Gli acidi grassi polinsaturi omega-3 sono una classe di lipidi con più di due doppi legami cis nella catena carboniosa, con il primo in posizione 3 rispetto all’estremità metilica.[1]
Per gli esseri umani i più importanti sono l’acido alfa-linolenico, l’acido docosapentaenoico, l’acido eicosapentaenoico e l’acido docosaesaenoico.[2]
Nei mammiferi, a causa della mancanza di due desaturasi, la Δ12-desaturasi e la Δ15-desaturasi, non è possibile la sintesi de novo degli acidi grassi polinsaturi omega-3, che potrà procedere dall’acido α-linolenico assunto con la dieta.[3][4]
Gli acidi docosapentaenoico, eicosapentaenoico e docosaesaenoico sono componenti strutturali delle membrane cellulari, dove sono presenti esterificati nei fosfolipidi.[5] Inoltre, sono substrati per la produzione di mediatori lipidici bioattivi ad azione antiinfiammatoria e pro-risolutiva quali eicosanoidi, maresine, resolvine, e protectine.[6][7][8]
Essenziali durante lo sviluppo embrionale e fetale, hanno un ruolo chiave anche lungo tutto l’arco della vita, dove la loro costante assunzione è correlata alla riduzione del rischio di diverse patologie croniche.[9]
Le principali fonti alimentari sono i prodotti della pesca.[10]
In Sintesi: Punti Chiave
- Definizione e struttura: gli omega-3 sono acidi grassi con due o più doppi legami cis nella catena carboniosa, con il primo doppio legame in posizione 3 dall’estremità metilica.
- Essenzialità e biosintesi: l’acido alfa-linolenico è l’unico omega-3 essenziale; negli esseri umani, la sua conversione nei derivati a catena lunga è limitata e soggetta a forte variabilità genetica.
- Distribuzione e ruolo: incorporati principalmente nei fosfolipidi di membrana, modulano la fluidità delle membrane, la funzionalità delle zattere lipidiche e l’espressione genica.
- Azione antinfiammatoria: sono substrati per la produzione di mediatori lipidici antinfiammatori e pro-risolutivi.
- Fonti alimentari e stabilità: i prodotti della pesca rappresentano le fonti primarie di omega-3 a catena lunga. Negli alimenti risultano stabili alle normali cotture.
Indice
- Classificazione e proprietà chimiche
- Biosintesi
- Distribuzione cellulare e tessutale
- EPA e DHA negli altri animali
- Omega-3 e salute umana
- Meccanismi molecolari dei PUFA omega-3
- Fonti alimentari
- Omega-3 negli alimenti
- Bibliografia
Classificazione e proprietà chimiche
Gli acidi grassi polinsaturi omega-3, o acidi grassi omega-3 (o semplicemente omega-3), sono acidi grassi insaturi caratterizzati dall’avere due o più doppi legami nella catena carboniosa, con il primo in posizione 3 rispetto all’estremità metilica. I doppi legami presenti sono in configurazione cis e separati da un gruppo metilenico (–CH2–), presentando quindi una struttura metilen-interrotta.[1]
La presenza dei doppi legami cis causa un ripiegamento della catena carboniosa che, riducendo le interazioni intermolecolari, abbassa il loro punto di fusione, rendendoli liquidi a temperatura ambiente, e aumenta la fluidità delle membrane cellulari in cui sono presenti.[5][11]
Nella dieta degli esseri umani i più importanti sono:
- l’acido α-linolenico (ALA; 18:3n-3), il più semplice, con 18 atomi di carbonio e tre doppi legami;
- l’acido eicosapentaenoico (EPA; 20:5n-3), con 20 atomi di carbonio e cinque doppi legami;
- l’acido docosapentaenoico (DPA; 22:5n-3) con 22 atomi di carbonio e cinque doppi legami;
- l’acido docosaesaenoico (DHA; 22:6n-3), che con i suoi 22 atomi di carbonio e sei doppi legami è il più complesso della serie omega-3.[2]
EPA, DPA e DHA avendo catene carboniose con più di 18 atomi di carbonio sono definiti acidi grassi polinsaturi a catena lunga o LC-PUFA, dall’inglese long-chain polyunsaturated fatty acids.[10]
Alla serie omega-3 appartengono anche l’acido lauroleico (12:1n-3), un acido grasso monoinsaturo con 12 atomi di carbonio, e l’acido stearidonico (18:4n-3), un PUFA a 18 atomi di carbonio e quattro doppi legami che costituisce un intermedio nella biosintesi LC-PUFA della serie omega-3, ed è poco comune nell’alimentazione umana.[1]
Biosintesi
La biosintesi degli acidi grassi polinsaturi omega-3 ha inizio dall’acido linoleico (LA), capostipite della famiglia degli acidi grassi polinsaturi omega-6. LA deriva dall’acido oleico, attraverso una reazione di desaturazione catalizzata dalla Δ12-desaturasi (EC 1.14.19.6), che inserisce un secondo doppio legame in posizione 6 dall’estremità metilica della catena carboniosa (il primo è in posizione 9).[12][13]
ALA è successivamente prodotto da LA nei cloroplasti del fitoplancton marino e delle piante terrestri vascolari. La reazione è catalizzata dalla Δ15-desaturasi (EC 1.14.19.13), che inserisce un doppio legame in posizione 3 dall’estremità metilica della catena carboniosa.[14]
A partire da ALA, la sintesi degli acidi grassi polinsaturi omega-3 procede attraverso successive reazioni di desaturazione, catalizzate dalla Δ5-desaturasi (EC 1.14.19.44) e dalla Δ6-desaturasi (EC 1.14.19.3), che interviene due volte, di allungamento della catena, catalizzate dalla elongasi 5 e/o dalla elongasi 2 (EC 2.3.1.199), e a una parziale β-ossidazione nei perossisomi.[9][15]
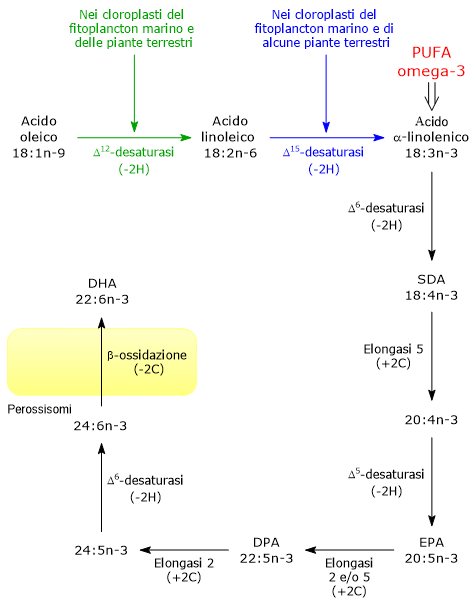
Va sottolineato che le piante terrestri vascolari non hanno l’assetto enzimatico necessario per sintetizzare gli LC-PUFA omega-3, come EPA e DHA, la cui produzione primaria è quasi esclusiva del fitoplancton.[13]
Enzimi condivisi
Gli enzimi che catalizzano la conversione di ALA in DHA sono gli stessi impiegati nelle vie metaboliche che portano alla sintesi dei PUFA omega-6, omega-7 e omega-9.[2]
Sebbene la Δ5-desaturasi e la Δ6-desaturasi abbiano come substrati preferenziali gli omega-3, la dieta occidentale presenta un rapporto LA/ALA fortemente sbilanciato a favore del primo. L’eccesso di LA satura gli enzimi, riducendo quindi fortemente la conversione di ALA in EPA e DHA, sebbene anche la sintesi di acido arachidonico (ARA) da LA sembri essere contenuta negli esseri umani.[16]
Da notare infine che sia la famiglia degli acidi grassi polinsaturi omega-3 che quella degli omega-6 esercitano un’inibizione a feedback sulla biosintesi degli acidi grassi polinsaturi omega-9.[4]
Biosintesi degli omega-3 nell’uomo
Molti animali, compreso l’uomo, hanno il corredo enzimatico necessario per sintetizzare, a partire da ALA di origine alimentare, tutti gli altri omega-3.[3][4]
Questa via metabolica è localizzata principalmente nel fegato e a livello del microcircolo cerebrale della barriera ematoencefalica, inclusi endotelio cerebrale e astrociti, con un’efficienza globale limitata e soggetta ad un’elevata variabilità individuale.[17][18]
L’efficienza biosintetica diminuisce progressivamente lungo la via: la conversione di ALA in EPA è limitata, con l’attività della Δ6-desaturasi che funge da principale fattore limitante, mentre la sintesi di DHA da EPA risulta ulteriormente ridotta. Va peraltro rilevato che l’efficienza di conversione è significativamente più elevata nelle donne in età fertile rispetto agli uomini, in virtù dell’azione modulatrice degli estrogeni.[17]
Tuttavia, recenti studi di genomica hanno dimostrato l’esistenza di un marcato polimorfismo globale nel cluster dei geni FADS, localizzati in modo contiguo sul cromosoma 11q12.2, che codificano per le desaturasi e in particolare per la Δ5-desaturasi, FADS1, e Δ6-desaturasi, FADS2.[15]
Il confronto tra il DNA estratto da reperti umani dell’Età del Bronzo e quello delle popolazioni contemporanee ha permesso di delineare l’evoluzione delle frequenze alleliche all’interno del cluster FADS, evidenziando come l’adattamento dietetico abbia guidato divergenze genotipiche e fenotipiche.[19]
- Nelle popolazioni europee, la transizione da una società di cacciatori-raccoglitori a una di agricoltori ha comportato un aumento dell’apporto di LA e ALA e una riduzione dell’apporto di EPA e ARA. La pressione selettiva avrebbe quindi favorito l’aplotipo associato a una maggiore espressione di FADS1 e ad una contestuale downregulation di FADS2.[15]
- Negli Inuit della Groenlandia è stato osservato un pattern adattativo esattamente opposto. L’intensa selezione naturale ha favorito alleli che riducono l’attività di conversione di LA e ALA in LC-PUFA, compensando così l’elevatissimo apporto dietetico diretto di EPA e DHA.[20]
Acidi grassi condizionatamente essenziali
La mancanza della Δ12-desaturasi e della Δ15-desaturasi nei mammiferi impedisce la sintesi de novo sia di LA che di ALA, e di conseguenza, di tutti gli acidi grassi polinsaturi omega-3. Pertanto, questi due acidi grassi sono gli unici veri acidi grassi essenziali, mentre tutti gli LC-PUFA omega-6 e omega-3 che da essi derivano, sono definiti condizionatamente essenziali (o semi-essenziali), in quanto la loro sintesi endogena diviene insufficiente a coprire i fabbisogni in assenza di un adeguato apporto dietetico di LA e ALA.[2][21]
Distribuzione cellulare e tessutale
Gli acidi grassi polinsaturi omega-3, in particolare EPA e DHA, sono componenti strutturali fondamentali delle membrane cellulari dove si trovano esterificati nei fosfolipidi, soprattutto nella fosfatidiletanolammina e, in misura minore, nella fosfatidilcolina.[5]
Le membrane cellulari rappresentano la loro principale sede di deposito, in particolare nei tessuti muscolare e nervoso.[11] Ad esempio, il DHA è il principale PUFA dei fosfolipidi delle membrane cellulari del sistema nervoso dei vertebrati e dei fotorecettori della retina.[22][23][24][25] Per questa loro natura strutturale, i PUFA, sia della serie omega-3 che omega-6, si differenziano dalla maggior parte degli altri acidi grassi, che sono invece immagazzinati in modo prevalente sotto forma di trigliceridi all’interno del tessuto adiposo.[1][4]
A livello molecolare, nei fosfolipidi di membrana i PUFA sono esterificati prevalentemente in posizione sn-2, mentre la posizione sn-1 è occupata prevalentemente da acidi grassi saturi, in particolare dall’acido palmitico e dall’acido stearico.[5]
EPA e DHA negli altri animali
Gli organismi privi della Δ15-desaturasi non sono in grado di sintetizzare ALA e, se necessario, sono obbligati a ottenerlo dai vegetali e/o da animali di cui si cibano, anche per, eventualmente, produrre EPA e/o DHA.[2][10]
I vertebrati erbivori terrestri, come le mucche, soddisfano le loro necessità di acidi grassi polinsaturi omega-3 a catena lunga producendoli a partire da ALA ottenuto mangiando le parti verdi delle piante.[8]
Ci sono animali che non necessitano di EPA e DHA, e ne sono praticamente privi. Tra questi, gli insetti terrestri, nei quali si ritrovano solo bassissimi livelli di EPA, paragonabili a quelli delle vitamine. In essi l’EPA è sintetizzato a partire dall’ALA di origine alimentare, e viene utilizzato per la produzione di eicosanoidi per la riproduzione e la risposta immunitaria.[26] Invece, gli insetti acquatici, come le specie a metamorfosi acquatica appartenenti agli ordini Odonata, Ephemeroptera, Trichoptera, presentano elevati livelli di EPA, mentre il DHA è praticamente assente.[27]
Sono molto ricche in EPA e DHA diverse classi di fitoplancton come le Cryptophyceae e le Dinophyceae, mentre sono molto ricche in EPA le Bacillariophyceae o diatomee. In genere, il fitoplancton marino rappresenta i produttori primari di EPA e DHA; pertanto, gli ecosistemi acquatici ne sono la principale fonte.[28][29] EPA e DHA risalgono la catena alimentare, passando dagli invertebrati ai pesci e quindi agli animali terrestri, esseri umani inclusi.[26]
Omega-3 e salute umana
Gli acidi grassi polinsaturi omega-3 sono componenti essenziali di una dieta salutare e bilanciata in quanto necessari nel corso dello sviluppo, a partire dalla vita fetale, e associati, nel corso della vita, a miglioramenti della salute e alla riduzione del rischio di malattia.[9]
I PUFA omega-3 sono essenziali nel corso dello sviluppo neurologico del feto, e la loro assunzione da parte della gestante è particolarmente importante nel terzo trimestre di gravidanza, fase in cui si verifica una crescita cerebrale significativa.[25]
Studi epidemiologici e trial clinici hanno associato un elevato apporto di EPA e DHA a una riduzione del rischio di eventi cardiovascolari e mortalità cardiaca. Tali effetti sono riconducibili al miglioramento di diversi fattori di rischio: si osserva una marcata riduzione dose-dipendente dei trigliceridi ematici, in genere con dosaggi di 2–4 g/die di EPA/DHA, un lieve aumento del colesterolo HDL e una modulazione favorevole dei marcatori infiammatori come la proteina C-reattiva, la pressione arteriosa e la frequenza cardiaca, con un effetto sostanzialmente neutro sul colesterolo LDL.[30][31]
Trial clinici di prevenzione cardiovascolare con formulazioni ad alto dosaggio di EPA (4 g/die) hanno confermato una significativa riduzione degli eventi ischemici coronarici nei pazienti ad alto rischio in terapia con statine, sebbene la somministrazione di elevate dosi di omega-3 richieda un attento monitoraggio clinico per un aumento dose-dipendente del rischio di fibrillazione atriale.[32][33]
EPA e DHA si sono dimostrati utili anche nel trattamento di malattie infiammatorie croniche, come l’artrite reumatoide, con un potenziale ruolo coadiuvante in patologie quali l’asma, la psoriasi e le malattie infiammatorie croniche intestinali (IBD), guidato principalmente dalla formazione dei mediatori lipidici specializzati della risoluzione infiammatoria.[34][35]
Gli LC-PUFA omega-3 sembrano invece avere effetti minimi o nulli sulla prevenzione e sul trattamento del diabete mellito di tipo 2.[36]
Rapporto omega-3/omega-6
Numerose prove epidemiologiche suggeriscono che una dieta con un basso valore del rapporto omega-3/omega-6 influenzi negativamente la salute, concorrendo alla promozione dello sviluppo di molte patologie croniche.[9]
Sono stati osservati tassi più bassi di incidenza di cancro, autoimmunità e malattia coronarica nelle popolazioni che consumano una dieta con un alto valore del rapporto omega-3/omega-6, in particolare negli Inuit della Groenlandia, nei Giapponesi e in altre società dove è elevato il consumo di pesce.[37][38] Tuttavia, la dieta di tipo occidentale è divenuta via via più ricca in acidi grassi saturi, povera in acidi grassi polinsaturi omega-3 e ricca in omega-6, con un rapporto omega-3/omega-6 compreso tra 1:10 e 1:20, quindi molto lontano dal rapporto raccomandato di 1:5.[34]
Il basso valore del rapporto omega-3/omega-6 è dovuto a diversi fattori, di seguito elencati.
- Gli alimenti vegetali sono in genere ricchi in ALA; tuttavia nell’agricoltura industriale le colture ricche in omega-6 hanno avuto molto più successo.[1]
- Il basso consumo di prodotti della pesca e di olio di pesce.[34]
- L’elevato consumo di animali allevati con mangimi a base di mais. A questo va aggiunto che il contenuto in omega-3 di alcune specie di pesci allevate è più basso rispetto alla controparte selvatica.[2]
- L’elevato consumo di oli ricchi in omega-6 e poveri in omega-3, come l’olio di cartamo, girasole, di semi di soia e di mais.[39]
Va tuttavia precisato che, sebbene il rapporto omega-3/omega-6 conservi un valore epidemiologico e didattico, la ricerca contemporanea e gli organismi di tutela della salute hanno focalizzato l’attenzione sull’introito assoluto di EPA + DHA e sul contestuale contenimento dell’eccesso di LA, piuttosto che sul solo valore numerico del rapporto.[3][40][41]
Nota: il rapporto omega-3/omega-6 non sembra avere influenza né sulla prevenzione né sul trattamento del diabete di tipo 2.[36]
Meccanismi molecolari dei PUFA omega-3
Sono in via di chiarimento i meccanismi molecolari alla base degli effetti cellulari e fisiologici degli acidi grassi polinsaturi omega-3, in particolare di EPA, DPA e DHA. Questi meccanismi chiamano in causa l’incorporazione dei due acidi grassi nei fosfolipidi di membrana, la loro liberazione in reazioni catalizzate dalla fosfolipasi A2 secretorie e le successive modifiche enzimatiche che portano alla formazione di mediatori lipidici bioattivi, dagli eicosanoidi agli SPM, dall’inglese specialized pro-resolving mediators.[13]
Membrane cellulari
Gli omega-3 sono componenti strutturali delle membrane cellulari, dove svolgono un ruolo essenziale nel regolarne la fluidità.[11] Grazie a questo effetto gli omega-3 modulano le risposte cellulari dipendenti da proteine di membrana, una funzione particolarmente importante nell’occhio, dove la presenza del DHA permette un’attività ottimale della rodopsina.[24] L’azione sulla fluidità di membrana è poi essenziale per gli animali poichilotermi, anche detti “a sangue freddo”, che vivono in acque o ambienti freddi. In questi, EPA e DHA concorrono al mantenimento, assieme alle proteine antigelo, dello stato cristallino-liquido delle membrane evitando il congelamento, o fase di gelificazione, dei lipidi di membrana, un effetto definito adattamento omeoviscoso.[42]
EPA e DHA sono in grado di modificare la formazione delle zattere lipidiche, microdomini con una composizione lipidica specifica che possono agire come piattaforme per l’azione dei recettori e per l’inizio di vie di segnalazione intracellulare.[43] Modificandone la formazione influenzano le vie di segnalazione in tipi cellulari differenti, come i neuroni, le cellule del sistema immunitario e le cellule cancerose.[9] In questo modo i due omega-3 sono in grado di modulare l’attivazione di fattori di trascrizione, come NF-κB, PPARs e SREBPs, e di conseguenza i pattern di espressione genica da essi regolati.[44] Questo ruolo è centrale rispetto alla loro funzione di controllo del metabolismo degli acidi grassi e dei trigliceridi, dell’infiammazione e della differenziazione adipocitaria.[9]
SPM
EPA, DPA e DHA, e tra gli omega-6 ARA, sono substrati per la produzione di numerosi mediatori lipidici bioattivi, tra cui gli eicosanoidi e gli SPM, ossia maresine, resolvine della serie D e protectine, molecole con un ruolo ben definito nella regolazione dell’infiammazione, immunità, aggregazione piastrinica, funzione renale e contrazione della muscolatura liscia.[45]
Gli eicosanoidi prodotti dall’acido arachidonico, che, dal punto di vista quantitativo, è il maggior substrato per la loro sintesi, hanno importanti ruoli fisiologici, ma un loro eccesso è stato associato a numerosi processi patologici.[9] L’aumento del contenuto di EPA e DHA nei fosfolipidi di membrana si accompagna a una riduzione del contenuto di ARA, a una riduzione nella produzione di mediatori lipidici derivanti da ARA, e a un aumento della produzione di mediatori lipidici derivanti dagli omega-3, in particolare gli SPM maresine, protectine e resolvine, della serie D dal DHA e della serie E dall’EPA, molecole responsabili di molte delle azioni antinfiammatorie, pro-risolutive e immuno-modulatrici attribuite agli acidi grassi polinsaturi omega-3.[7]
Azioni dirette
EPA, DPA e DHA possono svolgere un ruolo in forma libera. Sono infatti in grado di agire direttamente attraverso recettori di membrana accoppiati alle proteine G, modulandone l’attività o legandosi a specifici recettori nucleari, come il DHA su PPARα.[46]
Infine, riducono l’assorbimento degli acidi grassi polinsaturi omega-6, e a livello enzimatico inibiscono competitivamente la ciclossigenasi e la lipossigenasi e competono per le aciltransferasi.[1]
Fonti alimentari
I pesci provenienti dai mari freddi e gli invertebrati acquatici, ossia crostacei e i molluschi, sono la fonte più importante di acidi grassi polinsaturi omega-3 per l’uomo.[10] Questi animali sono in grado di convertire l’ALA in EPA, DPA e DHA e, soprattutto, di accumularli lungo la catena trofica marina, che in questo caso parte dal fitoplancton.[26] Inoltre, considerando il solo DHA, quest’ultimo è presente in concentrazione elevata in molti oli di pesce, specialmente in quelli di pesci cresciuti in acque fredde. Si noti però che molti di questi oli sono ricchi anche di acidi grassi saturi.[47]
Per chi non mangia prodotti della pesca, il fegato degli animali terrestri, ma anche la selvaggina dell’ordine dei Passeriformi, rappresentano una buona fonte di EPA e DHA.[48][49]
Per quanto riguarda le fonti vegetali, l’ALA si ritrova in concentrazioni elevate nei semi di lino e nel relativo olio, nelle noci, nei semi di chia, di canapa e nell’olio di colza. Le microalghe, come Schizochytrium sp., rappresentano l’unica fonte vegetale diretta di EPA e DHA, impiegata sia nell’integrazione alimentare, come nel caso dell’olio ottenuto da Schizochytrium sp. che è ricchissimo di DHA, sia nella produzione di mangimi per acquacoltura.[50]
Riguardo agli apporti giornalieri non è ancora chiaro quali siano i valori raccomandati. Nella tabella seguente sono riportati i valori suggeriti dalla FAO e dalla EFSA, sostanzialmente recepiti in Italia dai LARN della SINU.[3][41]
| Organizzazione | Categoria | Raccomandazione |
|---|---|---|
| FAO | Uomini adulti e donne adulte non gravide o non in allattamento | Almeno 250 mg di EPA + DHA al giorno |
| Donne gravide o in allattamento | Almeno 300 mg di EPA + DHA al giorno di cui almeno 200 mg dovrebbero essere di DHA | |
| Bambini di età compresa tra i 2 e i 4 anni | 100–150 mg di EPA + DHA al giorno | |
| Bambini dai 4 ai 6 anni | 150–200 mg di EPA + DHA al giorno | |
| Bambini dai 6 ai 10 anni | 200–250 mg di EPA + DHA al giorno | |
| EFSA | Uomini adulti e donne adulte non gravide | L’assunzione adeguata è di 250 mg di EPA + DHA al giorno |
| Donne gravide o in allattamento | Ulteriori 100–200 mg di DHA al giorno | |
| Neonati e bambini da 6 mesi a 2 anni | 100 mg di DHA al giorno | |
| Bambini dai 2 ai 18 anni | “Coerente con gli adulti” |
Omega-3 negli alimenti
Gli acidi grassi polinsaturi in forma libera sono particolarmente sensibili all’ossidazione da riscaldamento. I vari processi cui è sottoposto il cibo nella fase di preparazione potrebbero quindi ridurne il contenuto. Tuttavia, poiché negli alimenti gli acidi grassi polinsaturi omega-3 non sono presenti in forma libera, ma esterificati nei fosfolipidi di membrana, risultano molto meno suscettibili al danno ossidativo.[51]
Quando si valuta il contenuto di EPA e DHA negli alimenti, esprimerlo come percentuale rispetto agli acidi grassi totali anziché come contenuto quantitativo assoluto (mg/g di peso umido o di porzione edibile) può indurre in un errore di interpretazione.
Se ad esempio si considera un pesce grasso come il salmone, il suo contenuto assoluto di EPA + DHA è alto, circa 8 mg/g di peso umido, mentre se si esprime in percentuale si ottiene il 20%.
Di contro, il merluzzo atlantico presenta una percentuale di EPA + DHA di oltre il 40%, ma un contenuto assoluto inferiore a 3 mg/g di peso umido. In questo caso, l’elevata percentuale è un artefatto dovuto al fatto che il merluzzo è un pesce magro con pochissimi lipidi totali, mentre nei pesci grassi l’alta densità assoluta di EPA + DHA risulta apparentemente “diluita” dall’ampia riserva di altri acidi grassi, specialmente monoinsaturi e saturi, presenti nel tessuto adiposo dell’animale.[52]
Se invece si esprime il contenuto di EPA + DHA in mg/g di prodotto, non si osserva alcuna riduzione a seguito della maggior parte dei trattamenti cui il cibo è sottoposto nella fase di preparazione.[26]
Bibliografia
- a b c d e f Akoh C.C., Min D.B. Food lipids: chemistry, nutrition, and biotechnology. 4th Edition. Boca Raton: CRC Press, 2017. doi:10.1201/9781315151854
- a b c d e f Chow C.K. Fatty acids in foods and their health implication. 3rd Edition. CRC Press, 2008. doi:10.1201/9781420006902
- a b c d EFSA Panel on Dietetic Products, Nutrition, and Allergies (NDA). Scientific opinion on dietary reference values for fats, including saturated fatty acids, polyunsaturated fatty acids, monounsaturated fatty acids, trans fatty acids, and cholesterol. 2010. doi:10.2903/j.efsa.2010.1461
- a b c d Sprecher H. Metabolism of highly unsaturated n-3 and n-6 fatty acids. Biochim Biophys Acta. 2000 Jul 19;1486(2-3):219-31. doi:10.1016/s1388-1981(00)00077-9
- a b c d Alberts B., Heald B., Johnson A.D., Morgan D., Raff M., Roberts K., Walter P. Molecular Biology of the Cell. 7th Edition. Garland Science, 2022.
- ^ Serhan C.N. Pro-resolving lipid mediators are leads for resolution physiology. Nature 2014;510(7503):92-101. doi:10.1038/nature13479
- a b Duvall M.G., Levy B.D. DHA- and EPA-derived resolvins, protectins, and maresins in airway inflammation. Eur J Pharmacol 2016;785:144-155. doi:10.1016/j.ejphar.2015.11.001
- a b Kouba M., Mourot J. A review of nutritional effects on fat composition of animal products with special emphasis on n-3 polyunsaturated fatty acids. Biochimie 2011;93(1):13-7. doi:10.1016/j.biochi.2010.02.027
- a b c d e f g Calder P.C. Very long-chain n-3 fatty acids and human health: fact, fiction and the future. Proc Nutr Soc 2018 77(1):52-72. doi:10.1017/S0029665117003950
- a b c d Tocher D.R., Betancor M.B., Sprague M., Olsen R.E., Napier J.A. Omega-3 long-chain polyunsaturated fatty acids, EPA and DHA: bridging the gap between supply and demand. Nutrients 2019;11(1):89. doi:10.3390/nu11010089
- a b c Stubbs C.D., Smith A.D. The modification of mammalian membrane polyunsaturated fatty acid composition in relation to membrane fluidity and function. Biochim Biophys Acta 1984;779(1):89-137. doi:10.1016/0304-4157(84)90005-4
- ^ Okuley J., Lightner J., Feldmann K., Yadav N., Lark E., Browse J. Arabidopsis FAD2 gene encodes the enzyme that is essential for polyunsaturated lipid synthesis. Plant Cell 1994;6(1):147-58. doi:10.1105/tpc.6.1.147
- a b c Lee J.M., Lee H., Kang S. and Park W.J. Fatty acid desaturases, polyunsaturated fatty acid regulation, and biotechnological advances. Nutrients 2016;8(1):23. doi:10.3390/nu8010023
- ^ Yadav N.S., Wierzbicki A., Aegerter M., Caster C.S., Pérez-Grau L., Kinney A.J., Hitz W.D., Booth J.R. Jr, Schweiger B., Stecca K.L., Allen S.M., Blackwell M., Reiter R.S., Carlson T.J., Russell S.H., Feldmann K.A., Pierce J., Browse J. Cloning of higher plant omega-3 fatty acid desaturases. Plant Physiol 1993;103(2):467-76. doi:10.1104/pp.103.2.467
- a b c Buckley M.T., Racimo F., Allentoft M.E., et al. Selection in Europeans on fatty acid desaturases associated with dietary changes. Mol Biol Evol 2017;34(6):1307-1318. doi:10.1093/molbev/msx103
- ^ Williams C.M., Burdge G. Long-chain n-3 PUFA: plant v. marine sources. Proc Nutr Soc 2006;65(1):42-50. doi:10.1079/pns2005473
- a b Burdge G.C., Wootton S.A. Conversion of α-linolenic acid to eicosapentaenoic, docosapentaenoic and docosahexaenoic acids in young women. Br J Nutr 2002;88(4):411-420. doi:10.1079/BJN2002689
- ^ Kim H-Y. Novel metabolism of docosahexaenoic acid in neural cells. J Biol Chem 2007;282(26):18661-18665. doi:10.1074/jbc.R700015200
- ^ Mathieson I., Lazaridis I., Rohland N., Mallick S., Patterson N., Roodenberg S.A., Harney E., Stewardson K., Fernandes D., Novak M., et al. Genome-wide patterns of selection in 230 ancient Eurasians. Nature 2015;528:499-503. doi:10.1038/nature16152
- ^ Fumagalli M., Moltke I., Grarup N., Racimo F., Bjerregaard P., Jørgensen M.E., Korneliussen T.S., Gerbault P., Skotte L., Linneberg A., Christensen C., Brandslund I., Jørgensen T., Huerta-Sánchez E., Schmidt E.B., Pedersen O., Hansen T., Albrechtsen A., Nielsen R.. Greenlandic Inuit show genetic signatures of diet and climate adaptation. Science 2015;349(6254):1343-7. doi:10.1126/science.aab2319
- ^ Smith W., Mukhopadhyay R. Essential fatty acids: the work of George and Mildred Burr. J Biol Chem 2012;287(42):35439-35441. doi:10.1074/jbc.O112.000005
- ^ Salem N. Jr, Litman B., Kim H.Y., Gawrisch K. Mechanisms of action of docosahexaenoic acid in the nervous system. Lipids 2001;36(9):945-59. doi:10.1007/s11745-001-0805-6
- ^ Lauritzen L., Hansen H.S., Jørgensen M.H., Michaelsen K.F. The essentiality of long chain n-3 fatty acids in relation to development and function of the brain and retina. Prog Lipid Res 2001;40(1-2):1-94. doi:10.1016/s0163-7827(00)00017-5
- a b Niu S.L., Mitchell D.C., Lim S.Y., Wen Z.M., Kim H.Y., Salem N. Jr, Litman B.J. Reduced G protein-coupled signaling efficiency in retinal rod outer segments in response to n-3 fatty acid deficiency. J Biol Chem 2004;279(30):31098-104. doi:10.1074/jbc.M404376200
- a b McCann J.C., Ames B.N. Is docosahexaenoic acid, an n-3 long-chain polyunsaturated fatty acid, required for development of normal brain function? An overview of evidence from cognitive and behavioral tests in humans and animals. Am J Clin Nutr 2005;82(2):281-95. doi:10.1093/ajcn.82.2.281
- a b c d Gladyshev M.I., Sushchik N.N. Long-chain omega-3 polyunsaturated fatty acids in natural ecosystems and the human diet: assumptions and challenges. Biomolecules 2019;9(9):485. doi:10.3390/biom9090485
- ^ Popova O.N., Haritonov A.Y., Sushchik N.N., Makhutova O.N., Kalachova G.S., Kolmakova A.A., Gladyshev M.I. Export of aquatic productivity, including highly unsaturated fatty acids, to terrestrial ecosystems via Odonata. Sci Total Environ 2017;581-582:40-48. doi:10.1016/j.scitotenv.2017.01.017
- ^ Ahlgren G., Lundstedt L., Brett M., Forsberg C. Lipid composition and food quality of some freshwater phytoplankton for cladoceran zooplankters. J Plankton Res 1990;12(4):809-18. doi:10.1093/plankt/12.4.809
- ^ Muller-Navarra D.C. Biochemical versus mineral limitation in Daphnia. Limnol Oceanogr 1995;40:1209-1214. doi:10.4319/lo.1995.40.7.1209
- ^ AbuMweis S., Jew S., Tayyem R. Agraib L. Eicosapentaenoic acid and docosahexaenoic acid containing supplements modulate risk factors for cardiovascular disease: a meta-analysis of randomised placebo-control human clinical. J Hum Nutr Diet 2018;31(1):67-84. doi:10.1111/jhn.12493
- ^ Mensink R.P., Zock P.L., Kester A.D., Katan M.B. Effects of dietary fatty acids and carbohydrates on the ratio of serum total to HDL cholesterol and on serum lipids and apolipoproteins: a meta-analysis of 60 controlled trials. Am J Clin Nutr 2003;77(5):1146-55. doi:10.1093/ajcn/77.5.1146
- ^ Bhatt D.L., Steg P.G., Miller M., Brinton E.A., Jacobson T.A., Ketchum S.B., Doyle R.T. Jr, Juliano R.A., Jiao L., Granowitz C., Tardif J.C., Ballantyne C.M; REDUCE-IT Investigators. Cardiovascular risk reduction with icosapent ethyl for hypertriglyceridemia. N Engl J Med 2019;380(1):11-22. doi:10.1056/NEJMoa1812792
- ^ Khan S.U., Lone A.N., Khan M.S., Virani S.S., Blumenthal R.S., Nasir K., Miller M., Michos E.D., Ballantyne C.M., Boden W.E., Bhatt D.L. Effect of omega-3 fatty acids on cardiovascular outcomes: a systematic review and meta-analysis. EClinicalMedicine 2021;38:100997. doi:10.1016/j.eclinm.2021.100997
- a b c Simopoulos A.P. The importance of the omega-6/omega-3 fatty acid ratio in cardiovascular disease and other chronic diseases. Exp Biol Med 2008;233(6):6746-88. doi:10.1016/S0753-3322(02)00253-6
- ^ Calder P.C. Omega-3 fatty acids and inflammatory processes: from molecules to man. Biochem Soc Trans 2017;45(5):1105-1115. doi:10.1042/BST20160474
- a b Brown T.J., Brainard J., Song F., Wang X., Abdelhamid A., Hooper L. Omega-3, omega-6, and total dietary polyunsaturated fat for prevention and treatment of type 2 diabetes mellitus: systematic review and meta-analysis of randomised controlled trials. BMJ 2019;366:l4697. doi:10.1136/bmj.l4697
- ^ Kromann N., Green A. Epidemiological studies in the Upernavik district, Greenland. Incidence of some chronic diseases 1950-1974. Acta Med Scand 1980;208(5):401-6. doi:10.1111/j.0954-6820.1980.tb01221.x
- ^ Yano K., MacLean C.J., Reed D.M., Shimizu Y., Sasaki H., Kodama K., Kato H., Kagan A. A comparison of the 12-year mortality and predictive factors of coronary heart disease among Japanese men in Japan and Hawaii. Am J Epidemiol 1988;127(3):476-87. doi:10.1093/oxfordjournals.aje.a114824
- ^ Blasbalg T.L., Hibbeln J.R., Ramsden C.E., Majchrzak S..F, Rawlings R.R. Changes in consumption of omega-3 and omega-6 fatty acids in the United States during the 20th century. Am J Clin Nutr 2011;93(5):950-62. doi:10.3945/ajcn.110.006643
- ^ SanGiovanni J.P., Chew E.Y. The role of omega-3 long-chain polyunsaturated fatty acids in health and disease of the retina. Prog Retin Eye Res 2005;24(1):87-138. doi:10.1016/j.preteyeres.2004.06.002
- a b FAO. Global recommendations for EPA and DHA intake (As of 30 June 2014). In: Fats and fatty acids in human nutrition. Report of an expert consultation. FAO Food and Nutrition Paper 91. Rome, 2010. URL: https://www.fao.org/fileadmin/user_upload/nutrition/docs/requirements/fatsandfattacidsreport.pdf
- ^ Hazel J.R. Thermal adaptation in biological membranes: is homeoviscous adaptation the explanation? Annu Rev Physiol 1995;57:19-42. doi:10.1146/annurev.ph.57.030195.000315
- ^ Wassall S.R., Stillwell W. Polyunsaturated fatty acid-cholesterol interactions: domain formation in membranes. Biochim Biophys Acta 2009;1788(1):24-32. doi:10.1016/j.bbamem.2008.10.011
- ^ Jump D.B., Botolin D., Wang Y., Xu J., Christian B., Demeure O. Fatty acid regulation of hepatic gene transcription. J Nutr 2005;135(11):2503-6. doi:10.1093/jn/135.11.2503
- ^ Kuda O. Bioactive metabolites of docosahexaenoic acid. Biochimie 2017;136:12-20. doi:10.1016/j.biochi.2017.01.002
- ^ Oh D.Y., Talukdar S., Bae E.J., Imamura T., Morinaga H., Fan WQ, Li P., Lu W.J., Watkins S.M., Olefsky J.M. GPR120 is an omega-3 fatty acid receptor mediating potent anti-inflammatory and insulin-sensitizing effects. Cell 2010 142(5):687-698. doi:10.1016/j.cell.2010.07.041
- ^ Mason R.P., Sherratt S.C.R. Omega-3 fatty acid fish oil dietary supplements contain saturated fats and oxidized lipids that may interfere with their intended biological benefits. Biochem Biophys Res Commun 2017;483(1):425-429. doi:10.1016/j.bbrc.2016.12.127
- ^ Gladyshev M.I., Makhutova O.N., Gubanenko G.A., Rechkina E.A., Kalachova G.S., Sushchik N.N. Livers of terrestrial production animals as a source of long-chain polyunsaturated fatty acids for humans: an alternative to fish? Eur J Lipid Sci Technol 2015;117:1417-1421. doi:10.1002/ejlt.201400449
- ^ Gladyshev M.I., Popova O.N., Makhutova, O.N., Zinchenko, T.D., Golovatyuk, L.V., Yurchenko, Y.A., Kalachova, G.S., Krylov, A.V., Sushchik, N.N. Comparison of fatty acid compositions in birds feeding in aquatic and terrestrial ecosystems. Contemp Probl Ecol 2016;9:503-513. doi:10.1134/S1995425516040065
- ^ U.S. Department of Agriculture, Agricultural Research Service. FoodData Central, 2019.
- ^ Belitz H.-D., Grosch W., Schieberle P. Food Chemistry. 4th Edition. Springer, 2009.
- ^ Gladyshev M.I., Sushchik N.N., Tolomeev A.P., Dgebuadze Y.Y. Meta-analysis of factors associated with omega-3 fatty acid contents of wild fish. Rev Fish Biol Fish 2018;28:277-299. doi:10.1007/s11160-017-9511-0
Domande Frequenti
Quali acidi grassi polinsaturi omega-3 sono fondamentali per la salute?
I principali acidi grassi polinsaturi omega-3 sono l'EPA, il DHA e l'ALA. L'EPA ha 20 atomi di carbonio e cinque doppi legami, svolgendo un ruolo cardine nella protezione cardiovascolare, mentre il DHA ne ha 22 con sei doppi legami, risultando strutturale per la retina e il cervello.
Come si converte l'ALA negli altri acidi grassi polinsaturi omega-3 nel fegato?
Tra gli acidi grassi polinsaturi omega-3, l'ALA viene convertito in EPA e DHA tramite gli enzimi epatici desaturasi ed elongasi. Tuttavia, l'efficienza della conversione è fisiologicamente limitata, rimanendo in genere inferiore al 5-10% per la sintesi dell'EPA e a valori più bassi per il DHA.
Qual è il fabbisogno di acidi grassi polinsaturi omega-3 secondo FAO ed EFSA?
L'assunzione giornaliera di acidi grassi polinsaturi omega-3 raccomandata da FAO ed EFSA per un adulto è di almeno 250 mg di EPA e DHA combinati. In gravidanza e allattamento è richiesto un apporto supplementare di 100-200 mg al giorno di DHA per lo sviluppo fetale.