L’acido docosaesaenoico è un acido grasso polinsaturo a 22 atomi di carbonio e sei doppi legami cis.[1]
Nell’alimentazione umana le fonti principali sono i prodotti della pesca, in particolare quelli provenienti da acque fredde.[2]
Molti animali, compreso l’uomo, sono in grado di sintetizzarlo, anche se con efficienza molto variabile, a partire dall’acido alfa-linolenico il capostipite della famiglia degli acidi grassi polinsaturi omega-3.[3][4]
Si ritrova principalmente a livello delle membrane cellulari, esterificato nei fosfolipidi, ed è quindi un componente strutturale delle membrane stesse. È particolarmente abbondante nelle cellule nervose, e nel cervello rappresenta l’acido grasso polinsaturo più abbondante.[5][6]
L’acido docosaesaenoico è in grado di apportare numerosi benefici per la salute sia attraverso una sua azione diretta, sia agendo come precursore per la sintesi di lipidi bioattivi quali maresine, protectine e resolvine della serie D.[7]
In Sintesi: Punti chiave
- Struttura e proprietà chimiche: l’acido docosaesaenoico è un acido grasso polinsaturo omega-3 che costituisce un elemento strutturale fondamentale per la fluidità delle membrane cellulari, specialmente nei tessuti nervosi e retinici.
- Fonti alimentari e originarie: il fitoplancton marino rappresenta la fonte primaria di sintesi de novo, mentre i pesci di acque fredde e i prodotti della pesca costituiscono le principali fonti dietetiche per l’uomo.
- Biosintesi endogena: viene sintetizzato dall’acido alfa-linolenico attraverso una via enzimatica di desaturazione, elongazione e infine beta-ossidazione perossisomiale, sebbene con tassi di conversione nell’essere umano molto limitati.
- Mediatori pro-risolutivi (SPM): funge da precursore per la sintesi dei mediatori specializzati pro-risolutivi, cruciali per la risoluzione attiva dell’infiammazione.
- Implicazioni biologiche: riveste un ruolo vitale nello sviluppo e nella funzionalità del sistema nervoso, visivo, e immunitario.
Indice
- Proprietà chimiche
- Fonti alimentari
- Biosintesi
- Distribuzione cellulare e tessutale
- Acido docosaesaenoico e salute umana
- Bibliografia
Proprietà chimiche
L’acido docosaesaenoico ha un peso molecolare pari a 328,49 g/mol, formula molecolare C22H32O2 e notazione abbreviata 22:6n-3.
Secondo la nomenclatura IUPAC il suo nome sistematico è acido (4Z,7Z,10Z,13Z,16Z,19Z)-docosa-4,7,10,13,16,19-esaenoico; è anche detto acido cervonico, mentre un’abbreviazione ricorrente è DHA.[1]
La sua base coniugata è detta docosaesaenoato, ed è la forma con cui, a pH fisiologico, l’acido grasso libero si ritrova nei sistemi biologici avendo un pKa pari a circa 4,58.[8]
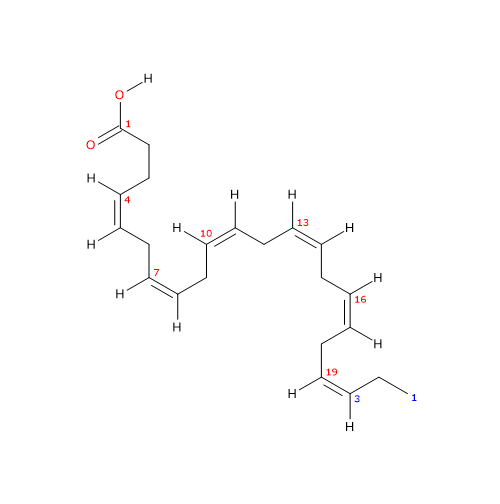
La presenza di sei doppi legami cis, in posizione 4,7,10,13,16 e 19 rispetto all’estremità carbossilica, pone l’acido docosaesaenoico nel gruppo degli acidi grassi insaturi. Inoltre, poiché il primo doppio legame, rispetto all’estremità metilica, è in posizione 3, la molecola appartiene al gruppo degli acidi grassi polinsaturi (PUFA) omega-3 o acidi grassi omega-3.[4]
Poiché la catena carboniosa è composta da 22 atomi di carbonio, il DHA può essere inserito nel gruppo degli acidi grassi a catena lunga, ossia acidi grassi con catene carboniose, sature o insature, formate da un numero di atomi compreso tra 13 e 22. Degno di nota che, tra gli acidi grassi insaturi presenti nel corpo umano in quantità consistente, è quello con la catena carboniosa più lunga e il maggior numero di doppi legami.[9]
È insolubile in acqua. A temperatura ambiente si presenta come un liquido oleoso giallo chiaro, con una densità di 0,93-0,95 g/mL.[10]
Il suo punto di fusione è pari a –44 °C (–47 °F; 229 K), mentre il punto di ebollizione è pari a 446,7 °C (836,1 °F; 719,8 K).[1]
| Categoria | Parametro | Specifiche | Riferimento/Valore |
|---|---|---|---|
| Identificatori | Nome IUPAC | Nome sistematico | Acido (4Z,7Z,10Z,13Z,16Z,19Z)-docosa-4,7,10,13,16,19-esaenoico |
| Numero CAS | Riferimento database CAS | 6217-54-5 | |
| PubChem CID | National Center for Biotechnology Information | 444805 | |
| ChEBI ID | EMBL-EBI Ontology | CHEBI:28125 | |
| Caratteristiche chimiche | Formula molecolare | Formula elementare | C22H32O2 |
| Peso molecolare | Massa molare | 328,49 g/mol | |
| Caratteristiche strutturali | Classe chimica | Classificazione degli acidi grassi | Acido grasso a catena lunga/Acido polinsaturo omega-3 |
| Notazione strutturale | Notazione abbreviata e pKa | 22:6n-3 (pKa: ≈ 4,58) | |
| Proprietà fisiche | Solubilità in acqua | Solubilità | Praticamente insolubile |
| Stato fisico | Aspetto, densità e punti di transizione | Liquido oleoso giallo chiaro (densità: 0,93–0,95 g/mL; p.f.: –44 °C; p.e.: 446,7 °C) |
Fonti alimentari
Le principali fonti alimentari di acido docosaesaenoico per l’uomo sono i prodotti della pesca, in special modo i pesci provenienti da mari freddi e pescati in alto mare, che accumulano questo acido grasso lungo la catena trofica marina. Ottime fonti sono anche i derivati del pesce, come l’olio di fegato di merluzzo e le uova, mentre i molluschi ne contengono quantità inferiori.[2]
Da notare che la fonte primaria originaria, e l’unica diretta di origine vegetale, è rappresentata dalle microalghe marine, il fitoplancton, dalle quali si estraggono oli con concentrazioni di DHA particolarmente elevate, come nel caso dell’olio ottenuto da Schizochytrium sp. Il DHA, risalendo la catena alimentare, giunge fino alle nostre tavole.[11][12]
Tutti i valori riportati in tabella sono soggetti a variabilità in base alla stagione di pesca, all’alimentazione dell’animale, con differenze sostanziali tra esemplari selvatici e di allevamento, e ai metodi di lavorazione, conservazione e cottura.[13]
| Categoria | Alimento/Fonte | Contenuto di DHA (mg/100 g) |
|---|---|---|
| Pesci freschi | Sgombro | 1400–1570 |
| Salmone atlantico selvatico | 1100–1450 | |
| Salmone atlantico d’allevamento | 1000–1100 | |
| Aringa atlantica | 900–1100 | |
| Tonno rosso fresco | 800–990 | |
| Acciughe o alici | 750–900 | |
| Sardina | 700–850 | |
| Derivati del pesce | Olio di fegato di merluzzo | 10000–11000 |
| Uova di pesce (bottarga, caviale) | 3400–3800 | |
| Tonno conservato (sgocciolato) | 100–300 | |
| Molluschi e crostacei | Calamari e seppie | 400–480 |
| Mitili | 250–320 | |
| Gamberi | 150–200 | |
| Fonti algali/vegetali | Olio di Schizochytrium sp. | 30000–40000 |
Biosintesi
Il DHA è sintetizzato solo da precursori assunti con la dieta. La via di sintesi dall’acido α-linolenico (ALA) si compone di sette reazioni, sei delle quali avvengono nel reticolo endoplasmatico, mentre l’ultima si svolge nei perossisomi.[4]
Nella prima reazione ALA è desaturato ad acido stearidonico (18:4n-3) nella reazione catalizzata dalla delta-6 desaturasi (EC 1.14.19.3).
L’acido stearidonico è allungato a 20:4n-3 nella reazione catalizzata dalla elongasi 5 (EC 2.3.1.199, al pari delle altre elongasi).
Il 20:4n-3 è desaturato ad acido eicosapentaenoico (EPA; 20:5n-3) nella reazione catalizzata dalla delta-5 desaturasi (EC 1.14.19.44).
EPA è allungato ad acido docosapentaenoico (DPA; 22:5n-3) nella reazione catalizzata dalla elongasi 5 e/o dalla elongasi 2. Non è ancora chiaro se una o entrambe le elongasi catalizzino questa reazione.
Il 22:5n-3 viene allungato a 24:5n-3 nella reazione catalizzata dalla elongasi 2.
Segue la desaturazione del 24:5n-3 catalizzata dalla delta-6 desaturasi, a 24:6n-3.
Il 24:6n-3 lascia il reticolo endoplasmatico e passa nei perossisomi dove subisce la rimozione, attraverso β-ossidazione, di due atomi di carbonio a dare l’acido docosaesaenoico.[3]
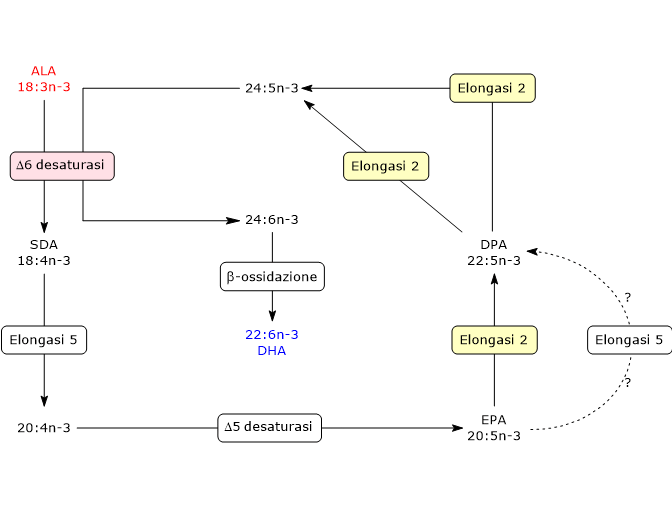
Il DHA lascia i perossisomi, torna nel reticolo endoplasmatico ed è incorporato nei fosfolipidi di membrana.[9]
Nell’uomo, la percentuale di conversione di ALA in DHA è bassa, oscillando dallo 0% al 4%. Valori maggiori, sino al 9%, si osservano nelle donne in età fertile, forse per azione estrogenica sulla delta-6 desaturasi.[14][15][16]
In alcune microalghe marine, come quelle appartenenti ai generi Pavlova e Isochrysis, in un eucariote marino ed eterotrofo, Thraustochyrium sp., e nel pesce teleosteo marino erbivoro, Siganus canaliculatus, è presente una delta-4 desaturasi che consente di sintetizzare il DHA direttamente dal 22:5n-3.[17][18][19]
Da notare che, in assenza di ALA nella dieta, tutti gli acidi grassi polinsaturi omega-3 che ne derivano sono considerati acidi grassi essenziali condizionali.[9]
Regolazione
La sintesi dell’acido docosaesaenoico è influenzata da fattori che modificano l’attività catalitica di alcuni tra gli enzimi coinvolti, in particolare la delta-6 desaturasi e la elongasi 2. Inoltre poiché gli enzimi che catalizzano la produzione di DHA da ALA sono condivisi con le vie che portano alla sintesi degli acidi grassi polinsaturi omega-6, omega-7 e omega-9, i differenti acidi grassi sono in competizione per gli stessi enzimi. A livello enzimatico, la competizione favorirebbe gli acidi grassi omega-3 ma, a causa dell’elevato contenuto di acido linoleico nella dieta occidentale, sembra essere favorita la sintesi degli acidi grassi polinsaturi omega-6.[4][9]
Delta-6 desaturasi
La delta-6 desaturasi catalizza sia l’ossidazione dell’acido α-linolenico ad acido stearidonico che del 24:5n-3 in 24:6n-3, il precursore diretto del DHA. La prima reazione rappresenta il passaggio limitante dell’intera via metabolica.[3][20]
L’enzima, al pari della delta-5 desaturasi, è inibito dal colesterolo, dagli acidi grassi saturi, dagli acidi grassi trans, dall’alcol, dai glucocorticoidi, e dall’adrenalina. Anche la carenza di proteine e il digiuno totale riducono l’attività della delta-6 desaturasi, mentre la parziale restrizione calorica e l’insulina la aumentano.[21]
Infine, la competizione tra acido α-linolenico e il 24:5n-3 per l’enzima potrebbe spiegare la riduzione nei livelli di DHA osservati a seguito di assunzioni di acido α-linolenico oltre certi valori.[22]
L’attività di entrambe le desaturasi è ridotta in caso di diabete mellito, iperlipidemia, ipertensione e sindrome metabolica.[23]
Va sottolineato che negli esseri umani le attività della delta-5 desaturasi e della delta-6 desaturasi sono basse, con delta-5 desaturasi > delta-6 desaturasi, per cui la conversione dell’acido α-linolenico e dell’acido linoleico nei rispettivi metaboliti potrebbe essere inadeguata alle richieste in determinate condizioni, come la vecchiaia e le malattie.[3][24]
Elongasi 2
La seconda reazione di allungamento catalizzata dalla elongasi 2, da DPA a 24:5n-3, sembra saturarsi quando l’acido α-linolenico, l’acido stearidonico o l’EPA sono forniti con la dieta, il che suggerisce che l’enzima potrebbe avere un ruolo cruciale nel definire se la sintesi di DHA possa essere incrementata attraverso la dieta.[25]
Competizione tra omega-3, omega-6 e omega-9
Gli acidi α-linolenico, linoleico e l’acido oleico sono metabolizzati dallo stesso set di desaturasi e di elongasi. Esiste dunque una competizione per questi enzimi. Tuttavia sembra che i substrati preferenzialmente metabolizzati siano gli acidi grassi omega-3, rispetto agli omega-6, e gli acidi grassi omega-6 rispetto agli acidi grassi omega-9, dunque con una sequenza di preferenza omega-3 > omega-6 > omega-9.[9]
Va comunque sottolineato che nella dieta occidentale, come anche nei tessuti, l’acido linoleico è molto più abbondante dell’acido α-linolenico, e questo sembra favorire la via che porta alla sintesi degli acidi grassi polinsaturi omega-6 rispetto alle altre, sebbene anche la conversione dell’acido linoleico in acido arachidonico non sia estremamente efficiente.[26]
In condizioni fisiologiche, gli acidi grassi polinsaturi omega-9 sono sintetizzati in quantità minime, insignificanti. Questo ha una grande importanza in quanto la presenza in circolo di elevate quantità di acido Mead (20:3n-9) indica che è in corso una deficienza di acidi grassi essenziali, ossia acidi grassi omega-3 e omega-6. Si noti che entrambe le famiglie omega-3 e omega-6 inibiscono la sintesi degli acidi grassi polinsaturi omega-9.[4][27]
Siti di sintesi
Il sito principale per la sintesi del DHA è il fegato.
La molecola sintetizzata, secreta nel torrente circolatorio, diviene disponibile per l’uptake da parte degli altri organi, ad esempio il cervello.[3][28]
Tra le cellule nervose, ossia neuroni, astrociti, microglia e oligodendrociti, solamente gli astrociti hanno la capacità di sintetizzare l’acido docosaesaenoico, mentre i neuroni, che sono le cellule che maggiormente accumulano la molecola, non possono sintetizzarlo mancando dell’attività desaturasica.[29]
Negli astrociti la capacità di sintesi dell’acido docosaesaenoico è influenzata negativamente dalla disponibilità della molecola preformata. Quindi, nel momento in cui l’apporto dell’acido grasso è adeguato, la loro attività biosintetica è una fonte quantitativamente minore per il suo accumulo nel cervello.[5]
Le cellule dell’endotelio microvascolare cerebrale, sebbene siano in grado di allungare e desaturare gli acidi grassi a catena più corta, fino a 18 C, mancano della capacità di portare a termine l’ultimo passaggio di desaturazione nella sintesi sia del DHA che del 22:5n-6.[30]
Distribuzione cellulare e tessutale
Nella maggior parte delle membrane cellulari l’acido docosaesaenoico si accumula preferenzialmente nei due principali fosfolipidi di membrana amminici e strutturali: la fosfatidiletanolammina e, in misura minore, la fosfatidilcolina. Questa regola non vale per tutte le cellule; nelle membrane dei neuroni elevate concentrazioni di DHA sono presenti nella fosfatidilserina, un fosfolipide non strutturale.[5][6]
Al pari degli altri PUFA, il DHA viene esterificato prevalentemente in posizione sn-2, mentre la posizione sn-1 è occupata in prevalenza da acidi grassi saturi, in particolare l’acido stearico e l’acido palmitico.[31]
Il DHA non è distribuito in modo omogeneo nei diversi tessuti e nelle diverse cellule, per cui, sulla base della quantità contenuta, si individuano due categorie.
Ci sono cellule e tessuti che ne contengono elevate quantità, spesso fino a quasi il 50% delle moli di tutte le catene aciliche. Esempi sono il segmento esterno dei bastoncelli della retina, lo sperma e i neuroni. Queste cellule contengono talmente tanto DHA che sono comuni fosfolipidi dove la molecola è presente sia in posizione sn-2 che in posizione sn-1. In queste sedi i livelli di DHA non sono influenzati dalla dieta.[32][33]
Il DHA è l’acido grasso polinsaturo più abbondante nel cervello, e tali livelli sembrano essere essenziali per una ottimale funzione neuronale e retinica. L’aumento del suo contenuto avviene durante il periodo dello sviluppo, per la maggior parte grazie alla molecola di derivazione dietetica o epatica, anche se una certa sintesi può avvenire negli astrociti.[34]
Ci sono poi altre cellule e tessuti che ne contengono normalmente meno di alcune moli percentuali di tutte le catene aciliche. In queste sedi, l’acido docosaesaenoico si trova principalmente in posizione sn-2, e i suoi livelli possono essere modificati dalla dieta. È quindi probabile che i benefici per la salute associati all’assunzione della molecola originino da queste sedi.[35]
Acido docosaesaenoico e salute umana
L’idea che il DHA potesse apportare benefici alla salute seguì i lavori condotti nei primi anni ’70 che ricercavano i motivi per cui le malattie trombotiche, e in particolare la cardiopatia ischemica, fossero rare negli eschimesi della Groenlandia. Secondo gli autori, la ragione era da ricercare nella loro dieta a base di pesce, ricca in DHA ed EPA, entrambi rinvenuti in buone quantità nel sangue di queste popolazioni.[36]
Queste osservazioni hanno dato il via a ricerche epidemiologiche, studi su colture cellulari e studi di alimentazione condotti sia su animali che sull’uomo, alla ricerca del legame tra i livelli di DHA e di EPA e la salute dell’uomo.
Gli effetti positivi dell’acido docosaesaenoico sono stati osservati praticamente in ogni genere di malattia, e proprio l’eterogeneità di queste condizioni suggerisce che la sua azione si svolga a un livello molecolare comune a molti tipi cellulari. Sono stati chiamati in causa sia effetti diretti dell’acido grasso che azioni indirette tramite suoi metaboliti, di cui al momento sono stati descritti oltre settanta.[37]
Il DHA è in grado di legarsi in forma libera a recettori di membrana accoppiati alle proteine G, alla proteina transmembrana GPR120, al recettore nucleare PPARα, mentre in forma esterificata influenza la fluidità delle membrane e la composizione delle zattere lipidiche di membrana.[38][39]
Una volta rilasciato dai fosfolipidi per azione della fosfolipasi A2, funge, analogamente ad ARA, EPA e DPA, da substrato per la produzione di numerosi mediatori lipidici bioattivi, gli SPM, dall’inglese specialized pro-resolving mediators, in grado di intervenire in una moltitudine di condizioni differenti.[7][40]
Meccanismi molecolari e sintesi degli SPM
Sintetizzati nel sito di infiammazione o di danno tissutale, sono prodotti in piccole quantità, alcuni sono collegati ad uno specifico tessuto o tipo cellulare, per altri la sintesi coinvolge più di un tipo cellulare, e si parla pertanto di sintesi transcellulare.[37] Questa classe di mediatori lipidici comprende quattro famiglie.
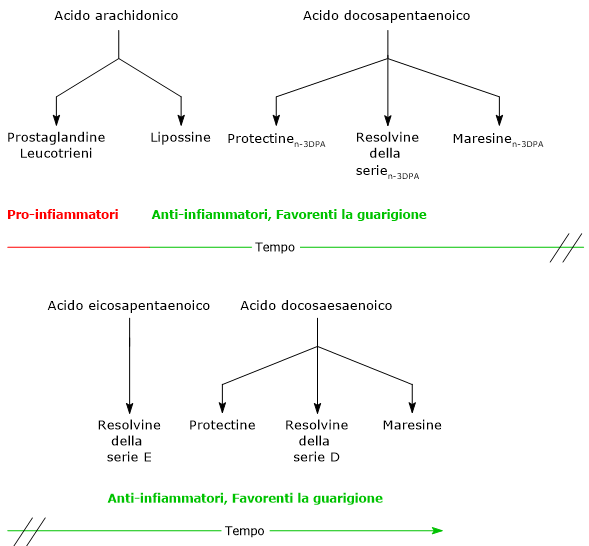
- Le lipossine, i primi SPM a essere scoperti, sono sintetizzate dall’acido arachidonico.
- Maresine, protectine e resolvine sono sintetizzate a partire dall’acido docosaesaenoico, ma anche da EPA e DPA.[40][41][42]
A seguito del legame a specifici recettori cellulari, sono in grado di regolare in modo potente l’attività delle cellule bersaglio. Ad esempio, nel caso dell’azione sull’infiammazione regolano l’infiltrazione dei neutrofili, la produzione di citochine e chemochine e la clearance dei neutrofili apoptotici da parte dei macrofagi, promuovendo in questo modo il ritorno all’omeostasi tissutale.[43]
Degno di nota è il fatto che mentre ARA è il precursore sia di mediatori lipidici pro-infiammatori che favorenti la risoluzione dell’infiammazione, DHA, EPA e DPA sono precursori di mediatori lipidici con azione anti-infiammatoria e citoprotettiva, quindi favorenti la guarigione.[7]
La sintesi di questi mediatori segue un preciso schema temporale. Nell’infiammazione acuta è infatti possibile individuare una fase proinfiammatoria, caratterizzata dalla sintesi di leucotrieni e prostaglandine dall’acido arachidonico, e una fase di risoluzione, nella quale sono sintetizzate lipossine, maresine, protectine e resolvine.[44]
L’acido docosaesaenoico può anche andare incontro a una perossidazione mediata da radicali liberi a formare metaboliti, quali i neuroprostani e i neurochetali, che possono essere prodotti e agire practically ovunque e a varie concentrazioni.[45]
Fosfolipasi A2 secretorie
L’acido docosaesaenoico presente nel sito della lesione può derivare dal torrente circolatorio o essere rilasciato dai fosfolipidi di membrana delle cellule coinvolte.
La quantità di DHA presente nel sangue di soggetti sani è modesta, l’1,3–5% del totale degli acidi grassi, variazioni attribuibili alla differenza nell’apporto con l’alimentazione. La molecola circolante raggiunge, entro pochi minuti dal danno iniziale, la sede della lesione, lascia il torrente circolatorio ed è disponibile per la conversione enzimatica in maresine, resolvine e protectine, che andranno ad interagire con le cellule immunitarie presenti in loco.[46][47]
Il rilascio del DHA dai fosfolipidi di membrana è dovuto all’attività idrolitica delle fosfolipasi A2 secretorie, i primi enzimi ad intervenire nel metabolismo dell’acido docosaesaenoico. Le fosfolipasi A2 secretorie sono una sottofamiglia delle fosfolipasi A2 (EC 3.1.1.4), una famiglia di idrolasi composta, nei mammiferi, da oltre trenta differenti enzimi, la cui attivazione è conseguenza dello specifico stimolo a carico della cellula bersaglio. Le fosfolipasi A2 secretorie comprendono circa un terzo di tutte le fosfolipasi A2, e catalizzano il rilascio dei PUFA dai fosfolipidi di membrana.[48][49]
Vie enzimatiche di conversione degli SPM
Il metabolismo dell’acido docosaesaenoico richiede l’intervento di differenti enzimi che, operando uno stretto controllo stereochimico, catalizzano la sintesi di molecole dotate di chiralità, e quindi definite utilizzando il sistema RS.[41] I principali enzimi che intervengono appartengono alle lipossigenasi, ciclossigenasi e idrolasi, oltre al citocromo P450.
Le lipossigenasi catalizzano la formazione di idroperossidi attraverso l’inserimento di ossigeno in configurazione S. Nello specifico, si tratta di 5-lipossigenasi (5-LOX; EC 1.13.11.34), 12-lipossigenasi (12-LOX; EC 1.13.11.31) e 15-lipossigenasi (15-LOX; EC 1.13.11.33). La 15-LOX avvia la via biosintetica principale portando alla formazione di 17S-idroperossi-DHA, il precursore comune delle resolvine della serie D e delle protectine, mentre la 12-LOX avvia la conversione del DHA in maresine attraverso il 14S-idroperossi-DHA. La 5-lipossigenasi e la 12-lipossigenasi possiedono anche un’attività generante epossidi.[50]
La cicloossigenasi 2 (COX-2), insieme alla COX-1, è una delle due isoforme di cicloossigenasi, enzimi che catalizzano la sintesi di endoperossidi (entrambi EC 1.14.99.1).
L’attività dei due enzimi è influenzata dall’aspirina, che causa l’acetilazione irreversibile di un residuo di serina nel sito attivo. L’acetilazione della COX-1 blocca l’attività enzimatica, inibendo così la sintesi di trombossani e prostaglandine.
Al contrario, l’acetilazione della COX-2 non porta all’inibizione dell’attività: l’enzima perde la sua attività cicloossigenasica ma acquisisce un’attività simile a quella della 15-lipossigenasi. Infatti, l’enzima acetilato, come il citocromo P450, catalizza l’inserimento dell’ossigeno in posizione 17, ma con stereochimica opposta rispetto a quella delle lipossigenasi, ovvero R anziché S. Di conseguenza, il prodotto della reazione è il 17R-idroperossi-DHA anziché il 17S-idroperossi-DHA, che funge da precursore per le resolvine correlate all’aspirina (aspirin-triggered) e per le protectine correlate all’aspirina.[51][52]
L’epossido idrolasi solubile (sEH; EC 3.3.2.10) idrolizza un’ampia gamma di epossidi nei mammiferi, partecipando ai passaggi di conversione enzimatica necessari per generare dioli vicinali.[53]
Diversi membri della superfamiglia del citocromo P450 sono coinvolti nel metabolismo dell’acido docosaesaenoico. Le isoforme appartenenti alle famiglie 1, 2 e 3 sono prevalentemente epossidasi capaci di agire anche su ARA ed EPA, generando derivati epossi-DHA, mentre le isoforme appartenenti alla famiglia 4 sono principalmente omega-idrossilasi.[54]
Altri enzimi coinvolti includono alcuni membri della famiglia della glutatione S-trasferasi (GST; EC 2.5.1.18), la gamma-glutammil trasferasi (GGT; EC 2.3.2.2) e le dipeptidasi, specificamente coinvolte nella biosintesi dei mediatori coniugati peptide-lipide.[55]
Bibliografia
- a b c National Center for Biotechnology Information. PubChem Compound Summary for CID 445580, Doconexent. https://pubchem.ncbi.nlm.nih.gov/compound/Doconexent. Accessed Oct. 11, 2026.
- a b Harris W.S. Omega-3 fatty acids. In: Coates P.M., Betz J.M., Blackman M.R., Cragg G.M., Levine M., Moss J., White J.D. Encyclopedia of Dietary Supplements. 2nd ed. CRC Press; 2015.
- a b c d e Burdge G.C., Calder P.C. Conversion of alpha-linolenic acid to longer-chain polyunsaturated fatty acids in human adults. Reprod Nutr Dev 2005;45(5):581-97. doi:10.1051/rnd:2005047
- a b c d e Akoh C.C., Min D.B. Food lipids: chemistry, nutrition, and biotechnology. 4th Edition. Boca Raton: CRC Press, 2017. doi:10.1201/9781315151854
- a b c Kim H-Y. Novel metabolism of docosahexaenoic acid in neural cells. J Biol Chem 2007;282(26):18661-18665. doi:10.1074/jbc.R700015200
- a b Alberts B., Heald B., Johnson A.D., Morgan D., Raff M., Roberts K., Walter P. Molecular Biology of the Cell. 7th Edition. Garland Science, 2022.
- a b c Serhan C.N. Pro-resolving lipid mediators are leads for resolution physiology. Nature 2014;510(7503):92-101. doi:10.1038/nature13479
- ^ Chemicalbook. Docosahexaenoic Acid.
- a b c d e Chow C.K. Fatty acids in foods and their health implication. 3rd Edition. 2008. doi:10.1201/9781420006902
- ^ O’Neil M.J. The Merck index: an encyclopedia of chemicals, drugs, and biological. 15th ed. Royal Society of Chemistry, 2013.
- ^ National Institutes of Health (NIH) – ODS: Omega-3 Fatty Acids Fact Sheet for Health Professionals. U.S. Department of Health and Human Services.
- ^ U.S. Department of Agriculture, Agricultural Research Service. FoodData Central, 2019.
- ^ Miller M.R., Nichols P.D., Carter C.G. n-3 Oil sources for use in aquaculture–alternatives to the unsustainable harvest of wild fish. Nutr Res Rev 2008;21(2):85-96. doi:10.1017/S0954422408102414
- ^ Gerster H. Can adults adequately convert alpha-linolenic acid (18:3n-3) to eicosapentaenoic acid (20:5n-3) and docosahexaenoic acid (22:6n-3)? Int J Vitam Nutr Res 1998;68(3):159-73.
- ^ Burdge G.C., Wootton S.A. Conversion of α-linolenic acid to eicosapentaenoic, docosapentaenoic and docosahexaenoic acids in young women. Br J Nutr 2002;88(4):411-420. doi:10.1079/BJN2002689
- ^ Giltay E.J., Gooren L.J., Toorians A.W., Katan M.B., Zock P.L. Docosahexaenoic acid concentrations are higher in women than in men because of estrogenic effects. Am J Clin Nutr 2004;80(5):1167-1174. doi:10.1093/ajcn/80.5.1167
- ^ Tonon T., Harvey D., Larson T.R., Graham I.A. Identification of a very long chain polyunsaturated fatty acid Δ4-desaturase from the microalga Pavlova lutheri. FEBS Lett 2002;527(1-3):228-232. doi:10.1016/s0014-5793(02)03240-0
- ^ Qiu X., Hong H., MacKenzie S.L. Identification of a Δ4 fatty acid desaturase from Thraustochytrium sp. involved in the biosynthesis of docosahexaenoic acid. J Biol Chem 2001;276(34):31561-31566. doi:10.1074/jbc.M102717200
- ^ Li Y., Monroig O., Zhang L., Wang S., Zheng X., Dick J.R., You C., Tocher D.R. Vertebrate fatty acyl desaturase with Δ4 activity. Proc Natl Acad Sci U S A 2010;107(39):16840-5. doi:10.1073/pnas.1008429107
- ^ Lee J.M., Lee H., Kang S. and Park W.J. Fatty acid desaturases, polyunsaturated fatty acid regulation, and biotechnological advances. Nutrients 2016;8(1):23. doi:10.3390/nu8010023
- ^ Nakamura M.T., Nara T.Y. Structure, function, and dietary regulation of delta6, delta5, and delta9 desaturases. Annu Rev Nutr 2004;24:345-76. doi:10.1146/annurev.nutr.24.121803.063211
- ^ Portolesi R., Powell B.C., Gibson R.A. Competition between 24:5n-3 and ALA for Delta 6 desaturase may limit the accumulation of DHA in HepG2 cell membranes. J Lipid Res 2007;48(7):1592-8. doi:10.1194/jlr.M700081-JLR200
- ^ Das U.N. Essential fatty acids: biochemistry, physiology and pathology. Biotechnol J 2006;1;420-439. doi:10.1002/biot.200600012
- ^ Horrobin D.F. Fatty acid metabolism in health and disease: the role of delta-6-desaturase. Am J Clin Nutr 1993;57(5 Suppl):732S-736S; discussion 736S-737S. doi:10.1093/ajcn/57.5.732S
- ^ Gregory M.K., Gibson R.A., Cook-Johnson R.J., Cleland L.G., James M.J. Elongase reactions as control points in long-chain polyunsaturated fatty acid synthesis. PLoS ONE 2011; 6(12):e29662. doi:10.1371/journal.pone.0029662
- ^ Simopoulos A.P. Importance of the ratio of omega-6/omega-3 essential fatty acids: evolutionary aspects. World Rev Nutr Diet 2003;92:1-22. doi:10.1159/000073788
- ^ Kawashima H., Yoshizawa K. The physiological and pathological properties of Mead acid, an endogenous multifunctional n-9 polyunsaturated fatty acid. Lipids Health Dis 2023;22(1):172. doi:10.1186/s12944-023-01937-6
- ^ Rapoport S.I., Rao J.S., Igarashi M. Brain metabolism of nutritionally essential polyunsaturated fatty acids depends on both the diet and the liver. Prostaglandins Leukot Essent Fatty Acids 2007;77(5-6):251-61. doi:10.1016/j.plefa.2007.10.023
- ^ Moore S.A., Yoder E., Murphy S., Dutton G.R., Spector A.A. Astrocytes, not neurons, produce docosahexaenoic acid (22:6 omega-3) and arachidonic acid (20:4 omega-6). J Neurochem 1991;56(2):518-24. doi:10.1111/j.1471-4159.1991.tb08180.x
- ^ Lacombe R.J.S., Chouinard-Watkins R., Bazinet R.P. Brain docosahexaenoic acid uptake and metabolism. Mol Aspects Med 2018;64:109-134. doi:10.1016/j.mam.2017.12.004
- ^ Harayama T., Riezman H. Understanding the diversity of membrane lipid composition. Nat Rev Mol Cell Biol 2018;19(5):281-296. doi:10.1038/nrm.2017.138
- ^ SanGiovanni J.P., Chew E.Y. The role of omega-3 long-chain polyunsaturated fatty acids in health and disease of the retina. Prog Retin Eye Res 2005;24(1):87-138. doi:10.1016/j.preteyeres.2004.06.002
- ^ Bazinet R.P., Layé S. Polyunsaturated fatty acids and their metabolites in brain function and disease. Nat Rev Neurosci 2014;15(12):771-85. doi:10.1038/nrn3820
- ^ Innis S.M. Dietary omega 3 fatty acids and the developing brain. Brain Res 2008;1237:35-43. doi:10.1016/j.brainres.2008.08.078
- ^ Calder P.C. Mechanisms of action of (n-3) fatty acids. J Nutr 2012;142(3):592S-599S. doi:10.3945/jn.111.155259
- ^ Dyerberg J., Bang H.O., Hjorne N. Fatty acid composition of the plasma lipids in Greenland Eskimos. Am J Clin Nutr 1975:28;958-966. doi:10.1093/ajcn/28.9.958
- a b Calder P.C. Omega-3 fatty acids and inflammatory processes: from molecules to man. Biochem Soc Trans 2017;45(5):1105-1115. doi:10.1042/BST20160474
- ^ Oh D.Y., Talukdar S., Bae E.J., Imamura T., Morinaga H., Fan W., Li P., Lu W.J., Watkins S.M., Olefsky J.M. GPR120 is an omega-3 fatty acid receptor mediating potent anti-inflammatory and insulin-sensitizing effects. Cell 2010;142(5):687-98. doi:10.1016/j.cell.2010.07.041
- ^ Wassall S.R., Stillwell W. Polyunsaturated fatty acid-cholesterol interactions: domain formation in membranes. Biochim Biophys Acta 2009;1788(1):24-32. doi:10.1016/j.bbamem.2008.10.011
- a b Serhan CN. Resolution phase of inflammation: novel endogenous anti-inflammatory and proresolving lipid mediators and pathways. Annu Rev Immunol 2007;25:101-37. doi:10.1146/annurev.immunol.25.022106.141647
- a b Serhan C.N., Petasis N.A. Resolvins and protectins in inflammation resolution. Chem Rev 2011;111:5922-5943. doi:10.1021/cr100396c
- ^ Serhan C.N., Dalli J., Colas R.A., Winkler J.W., Chiang N. Protectins and maresins: new pro-resolving families of mediators in acute inflammation and resolution bioactive metabolome. Biochim Biophys Acta 2015;1851(4):397-413. doi:10.1016/j.bbalip.2014.08.006
- ^ Chiang N., Serhan C.N. Specialized pro-resolving mediator network: an update on production and actions. Essays Biochem 2020;64(3):443-462. doi:10.1042/EBC20200018
- ^ Levy B.D., Clish C.B., Schmidt B., Gronert K., Serhan C.N. Lipid mediator class switching during acute inflammation: signals in resolution. Nat Immunol 2001 Jul;2(7):612-9. doi:10.1038/89759
- ^ Roy J., Le Guennec J.Y., Galano J.M., Thireau J., Bultel-Poncé V., Demion M., Oger C., Lee J.C., Durand T. Non-enzymatic cyclic oxygenated metabolites of omega-3 polyunsaturated fatty acid: Bioactive drugs? Biochimie 2016;120:56-61. doi:10.1016/j.biochi.2015.06.010
- ^ Harris W.S., Von Schacky C. The Omega-3 Index: a new risk factor for death from coronary heart disease? Prev Med 2004;39(1):212-20. doi:10.1016/j.ypmed.2004.02.030
- ^ Dalli J., Serhan C.N. Specific lipid mediator signatures of human phagocytes: microparticles stimulate macrophage efferocytosis and pro-resolving mediators. Blood 2012;120(15):e60-72. doi:10.1182/blood-2012-04-423525
- ^ Dennis E.A., Cao J., Hsu Y.H., Magrioti V., Kokotos G. Phospholipase A2 enzymes: physical structure, biological function, disease implication, chemical inhibition, and therapeutic intervention. Chem Rev 2011;111(10):6130-85. doi:10.1021/cr200085w
- ^ Murakami M., Lambeau G. Emerging roles of secreted phospholipase A(2) enzymes: an update. Biochimie 2013;95(1):43-50. doi:10.1016/j.biochi.2012.09.007
- ^ Haeggström J.Z., Funk C.D. Lipoxygenase and leukotriene pathways: biochemistry, biology, and roles in disease. Chem Rev 2011;111(10):5866-98. doi:10.1021/cr200246d
- ^ Clària J., Serhan C.N. Aspirin triggers previously undescribed bioactive eicosanoids by human endothelial cell-leukocyte interactions. Proc Natl Acad Sci U S A 1995;92(21):9475-9. doi:10.1073/pnas.92.21.9475
- ^ Serhan C.N., Hong S., Gronert K., Colgan S.P., Devchand P.R., Mirick G., Moussignac R.L. Resolvins: a family of bioactive products of omega-3 fatty acid transformation circuits initiated by aspirin treatment that counter proinflammation signals. J Exp Med 2002;196(8):1025-37. doi:10.1084/jem.20020760
- ^ Morisseau C., Hammock B.D. Epoxide hydrolases: mechanisms, inhibitor designs, and biological roles. Annu Rev Pharmacol Toxicol 2005;45:311-33. doi:10.1146/annurev.pharmtox.45.120403.095920
- ^ Shoieb S.M., El-Ghiaty M.A., Alqahtani M.A., El-Kadi A.O.S. Cytochrome P450-derived eicosanoids and inflammation in liver diseases. Prostaglandins Other Lipid Mediat 2020;147:106400. doi:10.1016/j.prostaglandins.2019.106400
- ^ Serhan C.N., Chiang N. Endogenous pro-resolving and anti-inflammatory lipid mediators: a new pharmacologic genus. Br J Pharmacol 2008;153 Suppl 1(Suppl 1):S200-15. doi:10.1038/sj.bjp.0707489
Domande Frequenti
Come avviene la conversione dell'acido alfa-linolenico in DHA?
La conversione da ALA a DHA avviene principalmente nel fegato tramite desaturazioni ed elongazioni successive, concluse dalla beta-ossidazione perossisomiale. Nell'essere umano il tasso di conversione è molto limitato, variando tra lo 0,05% e l'1% in base al sesso e all'apporto dietetico.
Quali sono le principali fonti alimentari e primarie di DHA?
Le fonti primarie di DHA sono le microalghe del fitoplancton marino, che sintetizzano il lipide de novo. I pesci grassi di mari freddi, come salmone, sgombro e aringhe, lo accumulano lungo la catena alimentare, rappresentando la fonte dietetica diretta principale per l'uomo.
In che modo il DHA contribuisce alla risoluzione dell'infiammazione?
Il DHA funge da precursore per la sintesi enzimatica dei mediatori specializzati pro-risolutivi (SPM), quali resolvine, protectine e maresine. Tali molecole bloccano il reclutamento dei neutrofili, promuovono la clearance dei detriti cellulari e stimolano la rigenerazione dei tessuti.