Il 2,3-bisfosfoglicerato (2,3-BPG) è la base coniugata dell’acido 2,3-bisfosfoglicerico.[1]
Nel globulo rosso, a livello del mare, è presente in concentrazioni vicine a quella dell’emoglobina (Hb), circa 5 mM. Nelle altre cellule è invece presente in tracce.[2]
Nell’eritrocita viene sintetizzato dall’1,3-bisfosfoglicerato (1,3-BPG) nella prima reazione dello shunt di Rapoport-Luebering.[3][4] Essendo lo shunt di Rapoport-Luebering una deviazione dalla glicolisi a monte delle reazioni che portano alla sintesi dell’ATP, la produzione di 2,3-bisfosfoglicerato comporta un costo energetico di una molecola di ATP per molecola prodotta.[5]
Il 2,3-BPG è uno dei regolatori dell’affinità dell’emoglobina per l’ossigeno.[6] È inoltre necessario all’attività catalitica della fosfoglicerato mutasi (EC 5.4.2.1), ed è un attivatore allosterico della ribosio fosfato pirofosfochinasi (EC 2.7.6.1).[2][7]
Legandosi all’emoglobina ne riduce l’affinità per l’ossigeno e facilita il rilascio a livello tissutale.[6]
Nell’eritrocita la sua concentrazione può variare in risposta a modifiche nel flusso di carbonio attraverso la via glicolitica. Tali modificazioni possono essere conseguenti a variazioni di altitudine, a malattie che compromettano l’ossigenazione del sangue, o difetti a carico di enzimi glicolitici, e si riflettono sull’affinità di legame tra emoglobina e ossigeno.[8][9][10]
In Sintesi: Punti Chiave
- Modulatore dell’emoglobina: il 2,3-bisfosfoglicerato è un effettore allosterico che riduce l’affinità dell’emoglobina per l’ossigeno, favorendone il rilascio ai tessuti.
- Shunt di Rapoport-Luebering: viene sintetizzato esclusivamente nei eritrociti a partire dall’1,3-BPG attraverso una deviazione della via glicolitica che richiede il sacrificio energetico di una molecola di ATP.
- Selettività strutturale: si lega saldamente alla tasca elettrostatica dell’emoglobina adulta (HbA) stabilizzando lo stato T (teso), ma ha una minore affinità per l’emoglobina fetale (HbF), garantendo il passaggio di ossigeno dalla madre al feto.
- Adattamento fisiologico: i suoi livelli intracellulari aumentano in risposta a ipossia, anemia e permanenza ad alta quota, agendo come meccanismo omeostatico per ottimizzare l’ossigenazione sistemica.
Indice
- Proprietà chimiche
- Metabolismo
- Ruolo del 2,3-bisfosfoglicerato
- Emoglobina
- 2,3-Bisfosfoglicerato ed emoglobina A
- 2,3-Bisfosfoglicerato ed emoglobina F
- Variazioni della concentrazione del 2,3-bisfosfoglicerato
- Bibliografia
Proprietà chimiche
Il 2,3-bisfosfoglicerato è la base coniugata dell’acido 2,3-bisfosfoglicerico. Ha un peso molecolare di 261,00 g/mol e formula molecolare C3H3O10P2−5.[1]
Secondo la nomenclatura IUPAC il suo nome è (2R)-2,3-bis(fosfonoossi)propanoato.[11]
Il pKa dell’acido 2,3-bisfosfoglicerico è pari a 0,48. Ne consegue che a pH fisiologico è presente quasi esclusivamente in forma ionizzata, il 2,3-BPG.[11]
È solubile in acqua, con un valore pari a 9,69 g/L.[1]
Il 2,3-bisfosfoglicerato è un isomero dell’1,3-bisfosfoglicerato.
Metabolismo
Il 2,3-bisfosfoglicerato viene prodotto a partire dall’intermedio glicolitico 1,3-bisfofoglicerato nella prima delle due tappe che compongono lo shunt di Rapoport-Luebering.[4]
Entrambe le reazioni dello shunt sono catalizzate dalla bisfosfoglicerato mutasi (EC 5.4.2.4), enzima multifunzionale in grado di svolgere tre attività principali, potendo agire come 2,3-BPG sintasi, l’attività principale, 2,3-BPG fosfatasi, e 2,3-BPG mutasi.[12]
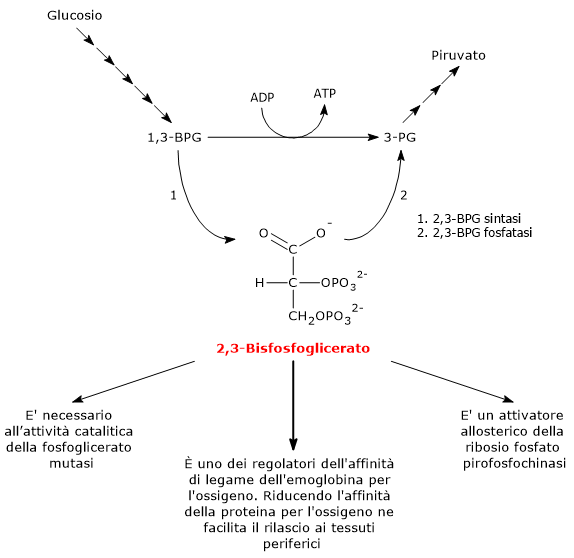
Nella prima reazione dello shunt di Rapoport-Luebering l’enzima agisce come sintasi e catalizza l’isomerizzazione dell’1,3-bisfosfoglicerato a 2,3-bisfosfoglicerato. L’enzima catalizza il trasferimento intermolecolare di un gruppo fosforico dal C-1 dell’1,3-bisfosfoglicerato al C-2 del 3-fosfoglicerato, che quindi deve essere presente nel sito attivo. La reazione comporta la conversione del 3-fosfoglicerato a 2,3-bisfosfoglicerato mentre l’1,3-BPG diviene il nuovo 3-fosfoglicerato.[6]
Nella seconda reazione dello shunt, il 2,3-bisfosfoglicerato viene defosforilato a 3-fosfoglicerato. La reazione è catalizzata dall’attività 2,3-BPG-fosfatasica della bisfosfoglicerato mutasi. Il 3-fosfoglicerato rientra quindi nella via glicolitica a livello dell’ottava tappa, catalizzata dalla fosfoglicerato mutasi (EC 5.4.2.1).[5]
Costo energetico della sintesi del 2,3-bisfosfoglicerato
La sintesi del 2,3-bisfosfoglicerato comporta un costo energetico per il globulo rosso pari a una molecola di ATP per molecola prodotta.[5]
L’1,3-BPG è il substrato della settima reazione della glicolisi, il trasferimento catalizzato dalla fosfoglicerato chinasi (EC 2.7.2.3) del gruppo fosforico ad alta energia legato al C-1 all’ADP, con formazione di 3-fosfoglicerato e ATP. La fosfoglicerato chinasi catalizza infatti la prima delle due fosforilazioni a livello del substrato che, lungo la via glicolitica, portano alla conservazione di parte dell’energia chimica presente nel glucosio in forma di ATP.[6]
Dato che, in condizioni fisiologiche, lo shunt di Rapoport-Luebering intercetta circa il 20% del flusso glicolitico, il costo energetico pagato dal globulo rosso per la sintesi del 2,3-bisfosfoglicerato implica l’esistenza di un equilibrio finemente regolato tra il fabbisogno energetico della cellula e la necessità di mantenere l’emoglobina in un adeguato stato di deossigenazione e ossigenazione.[13][14]
Ruolo del 2,3-bisfosfoglicerato
Il 2,3-bisfosfoglicerato svolge almeno tre funzioni.
- È necessario per l’attività catalitica della fosfoglicerato mutasi. Ne consegue che la molecola ha anche un ruolo nel controllo del livello degli intermedi glicolitici.[7]
- È uno degli attivatori allosterici della ribosio fosfato pirofosfochinasi (PRPP sintetasi). L’enzima catalizza l’attivazione del ribosio-5-fosfato, uno dei due prodotti della via del pentoso fosfato, a 5-fosforibosil-1-pirofosfato (PRPP), intermedio nella sintesi de novo delle purine.[2]
- Il 2,3-bisfosfoglicerato è coinvolto, assieme ad altri fattori, nella regolazione allosterica dell’affinità dell’emoglobina per l’ossigeno, concorrendo a regolarne il rilascio a livello dei tessuti periferici.[15] Nell’uomo, nella maggior parte dei primati e in molti altri mammiferi il 2,3-bisfosfoglicerato riduce l’affinità dell’emoglobina per l’ossigeno. In questo modo la molecola favorisce la dissociazione dell’ossigeno dall’emoglobina, facilitandone la cessione ai tessuti.[6] L’azione del 2,3-BPG è un esempio di regolazione allosterica eterotropica, ossia una regolazione allosterica in cui l’effettore è diverso dal normale ligando della proteina.[5]
Emoglobina
L’emoglobina è presente nei globuli rossi, e, in quasi tutti i vertebrati ha il compito di trasportare l’ossigeno molecolare ai tessuti.
La proteina ha una struttura quaternaria formata da quattro subunità e contiene quattro gruppi eme, uno per subunità, ognuno dei quali in grado di legare, reversibilmente, una molecola di ossigeno.[13]
In condizioni fisiologiche nell’uomo si distinguono due tipi di emoglobina: quella presente nell’adulto, indicata come emoglobina A, e quella fetale, l’emoglobina F.
L’emoglobina A è formata da due catene α, di 141 residui amminoacidici, e due catene β, di 146 residui amminoacidici. Dunque è un tetramero α2β2.
Nell’emoglobina F le catene β sono sostituite da catene γ, molto simili, ma non identiche alle β. Ne risulta un tetramero α2γ2.[13] Questa differenza ha una grande influenza sull’affinità della proteina per l’ossigeno.[5]
L’emoglobina può esistere in due conformazioni indicate come stato T, teso, e stato R, rilassato.
Sebbene l’ossigeno si leghi all’emoglobina sia nello stato T che in quello R, ha un’affinità maggiore per lo stato R, che viene stabilizzato dal legame. Il legame dell’ossigeno da parte dell’emoglobina è modulato da diversi fattori, alcuni con azione a breve termine e altri, come il 2,3-bisfosfoglicerato, che agiscono più a lungo termine.[6]
Cooperatività del legame emoglobina-ossigeno
L’emoglobina nello stato deossigenato si trova in conformazione T. Il legame dell’ossigeno all’emoglobina nello stato T può avvenire solo sul gruppo eme di una delle subunità α, essendo i gruppi eme delle subunità β nello stato T virtualmente inaccessibili.[6]
Il legame della prima molecola di ossigeno innesca una variazione conformazionale nella subunità α che la converte nello stato R. Tale modifica è trasmessa alle subunità adiacenti mediante interazioni subunità-subunità, modifica che determina il passaggio della seconda subunità α allo stato R. Ciò innesca cambiamenti conformazionali sequenziali che portano al passaggio della struttura quaternaria dell’emoglobina che lega due molecole di ossigeno, Hb:(O2)2, dallo stato T a quello R. A questo punto anche le subunità β possono legare l’ossigeno.[6]
Questo tipo di legame è detto cooperativo ed è alla base dell’andamento sigmoidale della curva di saturazione dell’emoglobina.[16]
Affinità dell’emoglobina per l’ossigeno
Nei capillari polmonari l’ossigeno si lega all’emoglobina, e, attraverso circolazione sanguigna, raggiunge i tessuti periferici dove viene rilasciato.
L’affinità di legame tra emoglobina e ossigeno è determinata principalmente dalla struttura dell’emoglobina. Tuttavia risulta modulata da vari fattori quali:
- temperatura;
- pH;
- anidride carbonica (CO2);
- ioni cloro (Cl⁻);
- 2,3-bisfosfoglicerato.[15]
Le modifiche nell’affinità del legame Hb-O2 che si verificano nel sistema circolatorio ad opera dei suddetti fattori sono tali da ottimizzare il carico di ossigeno a livello polmonare e la sua cessione nei tessuti periferici.[10]
Graficamente, le modifiche dell’affinità di legame indotte dagli effettori allosterici e dalla temperatura si traducono in spostamenti della curva di saturazione dell’emoglobina verso destra, nel caso di una diminuzione dell’affinità di legame, o verso sinistra, quando l’affinità di legame aumenta.[5]
Temperatura, pH, e CO2 operano un regolazione a breve termine.[10] Se ad esempio si considera il muscolo scheletrico durante l’esercizio fisico, vi si osserva un aumento della temperatura, della concentrazione degli ioni idrogeno (H+) e della pressione parziale della CO2. Alte concentrazioni di H+ e CO2 riducono l’affinità dell’emoglobina per l’ossigeno, un effetto noto come effetto Bohr. Anche l’aumento della temperatura diminuisce l’affinità. Tutto ciò favorisce il rilascio di ossigeno al tessuto muscolare.[17]
Anche gli ioni cloro e il 2,3-bisfosfoglicerato riducono l’affinità dell’emoglobina per l’ossigeno, ma si associano a una regolazione più a lungo termine.[10]
| Fattore/Modulatore | Variazione | Effetto sull’affinità (Hb-O2) | Spostamento curva/Impatto fisiologico |
|---|---|---|---|
| 2,3-Bisfosfoglicerato | Aumento | Riduzione | Verso destra (favorisce il rilascio ai tessuti) |
| Temperatura | Aumento | Riduzione | Verso destra (maggiore cessione durante l’esercizio) |
| pH | Diminuzione | Riduzione | Verso destra (effetto Bohr) |
| Anidride carbonica | Aumento | Riduzione | Verso destra (stabilizzazione dello stato T) |
| Ioni cloruro | Aumento | Riduzione | Verso destra (regolazione allosterica) |
2,3-Bisfosfoglicerato ed emoglobina A
Il 2,3-bisfosfoglicerato si va a legare all’emoglobina A mediante legami ionici che si stabiliscono con residui delle catene β carichi positivamente.
I legami tra il 2,3-bisfosfoglicerato e l’emoglobina si stabiliscono con le catene laterali della lisina 82 (Lys-82), istidina 143 (His-143), e il gruppo ammino-terminale di ciascuna delle due catene β. Questi residui vanno a formare una tasca elettrostatica complementare sia alla geometria molecolare che alla distribuzione di carica del 2,3-BPG.[5]
Il 2,3-BPG si lega all’emoglobina deossigenata e stabilizza lo stato T. Anche gli ioni idrogeno, cloro e l’anidride carbonica stabilizzano lo stato T.[10]
Nel passaggio dallo stato T a quello R, tra le varie modifiche conformazionali che si verificano nella struttura quaternaria dell’emoglobina, si verifica anche il restringimento della tasca di legame per 2,3-BPG tra le subunità β, impedendone quindi il legame.[11] Degno di nota è il fatto che mentre l’emoglobina ha quattro siti di legame per l’ossigeno molecolare, ne ha solo uno per il 2,3-BPG.[6]
Inoltre, il sito di legame per il 2,3-BPG è lontano da quello per l’ossigeno.[5]
2,3-Bisfosfoglicerato ed emoglobina F
Le catene γ dell’emoglobina F, analogamente alle catene β dell’emoglobina A, vanno a formare la tasca di legame per il 2,3-BPG.[5]
Tuttavia, nella tasca di legame sono presenti due cariche positive in meno rispetto all’emoglobina A. Infatti, in posizione 143 delle catene γ l’istidina è sostituita da una serina.[2]
Questa piccola differenza nella struttura primaria fa sì che il 2,3-bisfosfoglicerato si leghi con minor affinità, e di conseguenza che l’emoglobina F abbia un’affinità per l’ossigeno maggiore rispetto all’emoglobina materna. Ciò concorre ad assicurare il trasferimento dell’ossigeno dall’emoglobina A a quella F, quindi dalla circolazione materna a quella fetale.[6]
| Caratteristica | Emoglobina A | Emoglobina F |
|---|---|---|
| Composizione delle subunità | Tetramero α2β2 (due catene α e due catene β) | Tetramero α2γ2 (due catene α e due catene γ) |
| Residui nella tasca per il 2,3-BPG | Presenti catene laterali di Lys-82 e His-143 | Presenza di serina al posto dell’istidina in posizione 143 |
| Cariche positive nella tasca | Numero maggiore di cariche positive | Due cariche positive in meno |
| Affinità per il 2,3-BPG | Maggiore | Minore |
| Affinità per l’ossigeno | Standard | Maggiore rispetto all’emoglobina A |
| Impatto funzionale | Rilascio efficiente di ossigeno ai tessuti periferici | Favorisce il trasferimento dell’ossigeno dalla circolazione materna a quella fetale |
Variazioni della concentrazione del 2,3-bisfosfoglicerato
La concentrazione del 2,3-bisfosfoglicerato nel globulo rosso può essere influenzata da diversi fattori, sia fisiologici che patologici.[2]
Tra le condizioni fisiologiche c’è l’adattamento all’alta montagna, mentre tra le condizioni patologiche si hanno difetti genetici a carico di enzimi glicolitici sia a valle che a monte della reazione catalizzata dalla gliceraldeide-3-fosfato deidrogenasi (EC 1.2.1.12), e malattie che causano ipossia.[18][19]
In tutti i casi le variazioni sono conseguenti a modifiche nella sua velocità di sintesi, e si riflettono sull’affinità dell’emoglobina per l’ossigeno.
Adattamento all’alta montagna
L’adattamento all’alta montagna è un processo piuttosto complesso che comporta anche un aumento del numero dei globuli rossi e del loro contenuto in emoglobina. Queste modifiche richiedono, per completarsi, settimane. Tuttavia, già dopo un giorno di permanenza in alta quota viene percepito un certo grado di adattamento. Questo effetto è conseguenza dell’aumento della concentrazione eritrocitaria del 2,3-bisfosfoglicerato.[2]
Ciò che accade è che la bassa pressione parziale dell’ossigeno (ipossia) stimola la glicolisi. A sua volta questo comporta un aumento del flusso di carbonio attraverso lo shunt di Rapoport-Luebering con conseguente aumento della sintesi del 2,3-bisfosfoglicerato, la cui concentrazione che può arrivare sino a 8 mM. Tale aumento determina una riduzione dell’affinità dell’emoglobina per l’ossigeno, che ne facilita il rilascio ai tessuti periferici, concorrendo così all’adattamento all’alta montagna.[5]
Anemia
Variazioni della concentrazione eritrocitaria del 2,3-bisfosfoglicerato si hanno anche in due malattie a trasmissione autosomica recessiva: l’anemia emolitica non sferocitica da deficit di esochinasi e l’anemia emolitica da deficit di piruvato chinasi negli eritrociti.[18][19]
Nell’anemia emolitica dovuta a un deficit di piruvato chinasi negli eritrociti (EC 2.7.1.40), la carenza dell’enzima causa un incremento della sintesi di 2,3-BPG e, di conseguenza, una riduzione dell’affinità dell’emoglobina per l’ossigeno.[8] Un incremento della concentrazione del 2,3-BPG si verifica anche nei soggetti affetti da condizioni che limitano l’ossigenazione del sangue, che causano cioè ipossia. Un esempio è l’insufficienza cardiopolmonare.[2]
Nell’anemia emolitica non sferocitica causata da un deficit di esochinasi (EC 2.7.1.1), il deficit enzimatico eritrocitario causa una riduzione della concentrazione del 2,3-bisfosfoglicerato, portando così a un aumento dell’affinità dell’emoglobina per l’ossigeno.[9]
| Condizione | Variazione del 2,3-BPG | Effetto sull’affinità (Hb-O2) | Impatto fisiologico/Clinico |
|---|---|---|---|
| Alta quota/Ipossia | Aumento (fino a ≈ 8 mM) | Riduzione | Facilita il rilascio di ossigeno ai tessuti periferici come adattamento omeostatico |
| Deficit di piruvato chinasi | Aumento | Riduzione | L’anomalia enzimatica incrementa la sintesi di 2,3-BPG, riducendo l’affinità dell’emoglobina |
| Insufficienza cardiopolmonare (ipossia) | Aumento | Riduzione | Risposta compensatoria alla ridotta ossigenazione ematica sistemica |
| Deficit di esochinasi | Diminuzione | Aumento | Il blocco precoce della glicolisi riduce la produzione di 2,3-BPG e aumenta l’affinità dell’emoglobina |
Bibliografia
- a b c National Center for Biotechnology Information. PubChem Compound Summary for CID 9548671, 2,3-Bisphosphoglycerate. https://pubchem.ncbi.nlm.nih.gov/compound/2_3-Bisphosphoglycerate. Accessed Feb. 16, 2025.
- a b c d e f g Heilman D., Woski S., Voet D., Voet J.G., Pratt C.W. Fundamentals of biochemistry: life at the molecular level. 6th Edition. Wiley, 2023.
- a b Rapoport S., Luebering J. Glycerate-2,3-diphosphatase. J Biol Chem 1951;189(2):683-694.
- a b Rapoport S., Luebering J. The formation of 2,3-diphosphoglycerate in rabbit erythrocytes: the existence of a diphosphoglycerate mutase. J Biol Chem 1950;183(2):507-516.
- a b c d e f g h i j Nelson D.L., Cox M.M. Lehninger. Principles of biochemistry. 8th Edition. W.H. Freeman and Company, 2021.
- a b c d e f g h i j Garrett R.H., Grisham C.M. Biochemistry. 7th Edition. Cengage Learning, 2023.
- a b Oslund R.C., Su X., Haugbro M., Kee J-M., Esposito M., David Y., Wang B., Ge E., Perlman D.H., Kang Y., Muir T.W., Rabinowitz J.D. Bisphosphoglycerate mutase controls serine pathway flux via 3-phosphoglycerate. Nat Chem Biol 2017;13:1081-1087. doi:10.1038/nchembio.2453
- a b Enegela O.A., Anjum F. Pyruvate Kinase Deficiency. [Updated 2023 Apr 27]. In: StatPearls [Internet]. Treasure Island (FL): StatPearls Publishing; 2025 Jan-. Available from: https://www.ncbi.nlm.nih.gov/books/NBK560581/
- a b Paglia D.E., Shende A., Lanzkowsky P., Valentine W.N. Hexokinase “New Hyde Park”: a low activity erythrocyte isozyme in a Chinese kindred. Am J Hematol 1981;10(2):107-17. doi:10.1002/ajh.2830100202
- a b c d e Webb K.L., Dominelli P.B., Baker S.E., Klassen S.A., Joyner M.J., Senefeld J.W., Wiggins C.C. Influence of high hemoglobin-oxygen affinity on humans during hypoxia. Front Physiol 2022;12:763933. doi:10.3389/fphys.2021.763933
- a b HMDB. Metabocard for 2,3-Diphosphoglyceric acid. https://hmdb.ca/metabolites/HMDB0001294
- ^ Aljahdali A.S., Musayev F.N., Burgner J.W. 2nd, Ghatge M.S., Shekar V., Zhang Y., Omar A.M., Safo M.K. Molecular insight into 2-phosphoglycolate activation of the phosphatase activity of bisphosphoglycerate mutase. Acta Crystallogr D Struct Biol 2022;78(Pt 4):472-482. doi:10.1107/S2059798322001802
- a b c Moran L.A., Horton H.R., Scrimgeour K.G., Perry M.D. Principles of Biochemistry. 5th Edition. Pearson, 2012.
- ^ Hodgkins S.R. 6 – Erythrocyte metabolism and membrane structure and function. Editor(s): Keohane E.M., Otto C.N., Walenga J.M. Rodak’s Hematology (Sixth Edition), Elsevier. 2020:78-90. doi:10.1016/B978-0-323-53045-3.00015-5
- a b Mairbäurl H., Oelz O., Bärtsch P. Interactions between Hb, Mg, DPG, ATP, and Cl determine the change in Hb-O2 affinity at high altitude. J Appl Physiol 1993;74(1):40-8. doi:10.1152/jappl.1993.74.1.40
- ^ Henry E.R., Bettati S., Hofrichter J., Eaton W.A. A tertiary two-state allosteric model for hemoglobin. Biophys Chem 2002;98(1-2):149-64. doi:10.1016/s0301-4622(02)00091-1
- ^ Böning D., Schwiegart U., Tibes U., Hemmer B. Influences of exercise and endurance training on the oxygen dissociation curve of blood under in vivo and in vitro conditions. Eur J Appl Physiol Occup Physiol 1975;34(1):1-10. doi:10.1007/BF00999910
- a b Orphanet: hemolytic anemia due to red cell pyruvate kinase deficiency. https://www.orpha.net/en/disease/detail/766
- a b Orphanet: non-spherocytic hemolytic anemia due to hexokinase deficiency. https://www.orpha.net/en/disease/detail/90031
Domande Frequenti
Perché il 2,3-bisfosfoglicerato è importante nei globuli rossi?
Il 2,3-BPG è abbondante negli eritrociti perché svolge un ruolo centrale nel modulare la funzione dell'emoglobina. È inoltre necessario per l'attività della fosfoglicerato mutasi e contribuisce alla regolazione del metabolismo glicolitico all'interno dei globuli rossi.
Come viene prodotto il 2,3-bisfosfoglicerato durante la glicolisi?
Il 2,3-BPG viene sintetizzato a partire dall'1,3-bisfosfoglicerato attraverso lo shunt di Rapoport-Luebering, una via glicolitica specifica degli eritrociti. Questo percorso devia gli intermedi glicolitici bypassando una reazione che normalmente genera ATP.
In che modo il 2,3-BPG regola l'affinità dell'emoglobina per l'ossigeno?
Il 2,3-BPG si lega all'emoglobina deossigenata e ne stabilizza la conformazione T (tesa), riducendo l'affinità per l'ossigeno. Ciò favorisce il rilascio di ossigeno nei tessuti periferici e contribuisce alla regolazione fisiologica del trasporto di ossigeno nell'uomo.
Qual è la differenza nel legame del 2,3-BPG tra HbA e HbF?
Il 2,3-BPG si lega meno saldamente all'Hb fetale (HbF) rispetto a quella adulta (HbA) perché le catene γ della HbF contengono meno residui carichi positivamente nella tasca di legame. Questo aumenta l'affinità della HbF per l'ossigeno e favorisce il trasferimento di ossigeno dalla madre al feto.
Perché i livelli di 2,3-bisfosfoglicerato aumentano in alta quota?
In alta quota, la ridotta disponibilità di ossigeno stimola l'aumento della sintesi di 2,3-BPG nei globuli rossi. Concentrazioni più elevate riducono l'affinità dell'emoglobina per l'ossigeno, facilitando la cessione di ossigeno ai tessuti e supportando l'adattamento fisiologico all'ipossia.